
Keywords:家禽腸道微生態;短鏈脂肪酸;黏液屏障;MUC2;丁酸;飼料效率
摘要
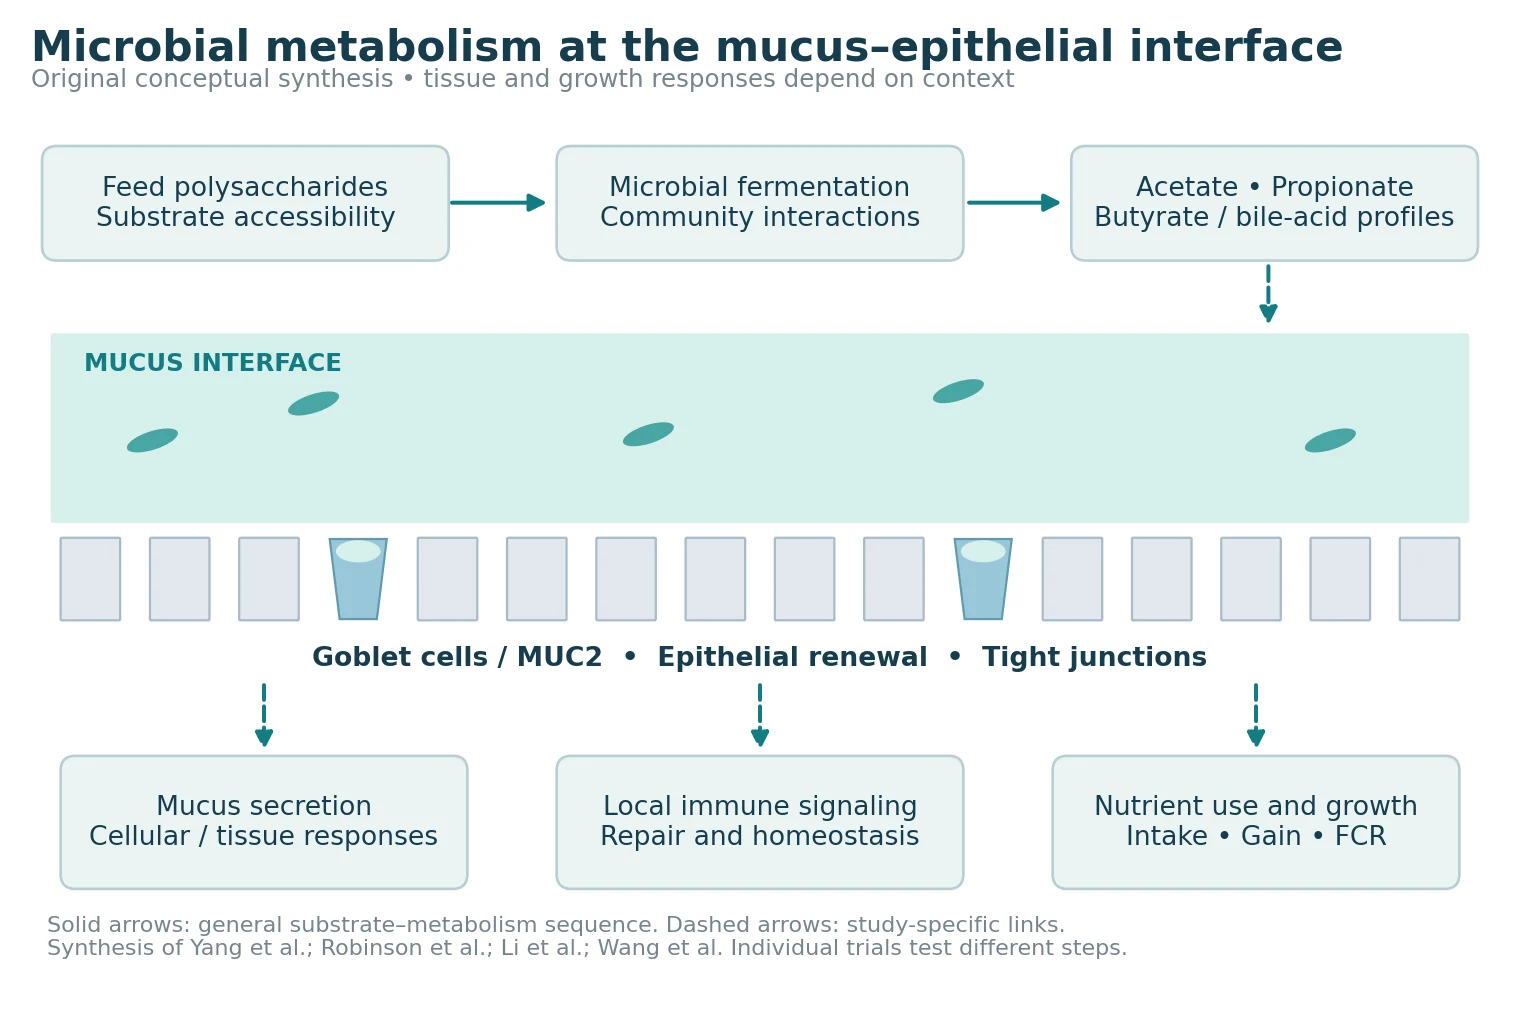
家禽腸道健康是維繫營養吸收、生長表現與環境適應的重要基礎。腸道微生物利用部分宿主難以消化的碳水化合物,形成乙酸、丙酸與丁酸等短鏈脂肪酸(SCFAs),並參與膽汁酸轉化。這些代謝活動連結腸腔的基質供應與宿主的上皮、黏液及免疫反應。由杯狀細胞與黏蛋白構成的黏液屏障,調節微生物與上皮的接觸,亦形成腸道生態的重要介面。原始研究顯示,特定纖維或丁酸介入可伴隨黏液層、MUC2及組織修復反應;其結果則受腸段、日齡、材料與炎症背景影響,局部反應與全期生長未必同步。本文以「微生物代謝如何透過黏液屏障影響家禽生長」為核心問題,整合群落、代謝物、細胞與動物研究,梳理機制連結、比較結果差異,並討論微生態營養的科學與應用意義。[1, 2, 3, 4, 5, 6, 7]
1. 諸論|從菌相研究走向腸道功能
相同飼料進入不同雞群後,消化利用與生長反應仍可能不同。除了宿主遺傳與管理條件,微生物對剩餘底物的處理,以及上皮如何回應這些代謝活動,構成另一層生物學差異。腸道微生態研究的重點,因此逐漸由「有哪些菌」推進到「它們產生什麼、作用在哪裡、宿主發生什麼變化」。[1, 4, 6]
黏液屏障是連接這些問題的合適切入點。它與微生物直接相鄰,又由宿主持續生成;當黏液分泌、上皮更新與局部免疫調節協調時,腸道才能同時執行吸收與防禦。本文依「底物與代謝→黏液與上皮→宿主及生長」整合證據,將群落介入與直接代謝物介入放在可比較的框架中。
2. 微生物代謝網絡:由飼料底物形成局部化學環境
2.1 碳水化合物的可利用性,塑造不同群落功能
進入後段腸道的碳水化合物,為能利用這些基質的微生物提供資源。纖維的結構與可利用性不同,群落反應亦不同。Yang等人將β-葡聚糖、阿拉伯木聚糖及抗性澱粉放入同一研究架構:先觀察盲腸群落的基質反應,再比較正常纖維、纖維缺乏與補充日糧。這項設計呈現的是指定基質與既有群落的互作,而非所有纖維共享的單一作用。[1]
2.2 SCFAs與膽汁酸:化學訊息需要逐一辨認
乙酸、丙酸與丁酸同屬SCFAs,卻有不同的生成、利用與分布。發酵產物可成為宿主與其他微生物利用的碳源,亦能參與細胞訊號調節;測得濃度則是生成、吸收與腸道流動共同作用的結果。Yang研究中,阿拉伯木聚糖與抗性澱粉改變部分SCFAs及膽汁酸譜,但丁酸濃度在組間相近,盲腸與糞便丙酸亦呈現不同方向。這使「代謝物增加」成為需要指定分子與腸段的科學問題。[1]
同樣重要的是,直接補充丁酸鹽與促進群落發酵,代表不同證據線。前者檢驗材料到達宿主後的反應,後者還包含基質利用、群落競爭與代謝產物去向。兩類研究共同描繪可能的作用鏈,但各環節需要相應測量才能接合。[1, 2, 5]
3. 黏液屏障:杯狀細胞、MUC2與上皮如何協作
3.1 黏蛋白分泌讓腸道建立持續更新的介面
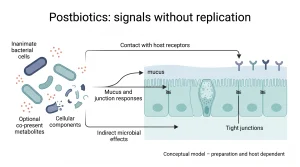
杯狀細胞分泌的黏蛋白,形成水合的黏液介面;MUC2是研究腸道黏液時的重要分子。這個介面調節腸腔物質與上皮的接觸,也使部分微生物在接近宿主的位置活動。因此,黏液的意義不只在厚度,還涉及分泌細胞、黏蛋白表現及組織狀態。[1, 3]
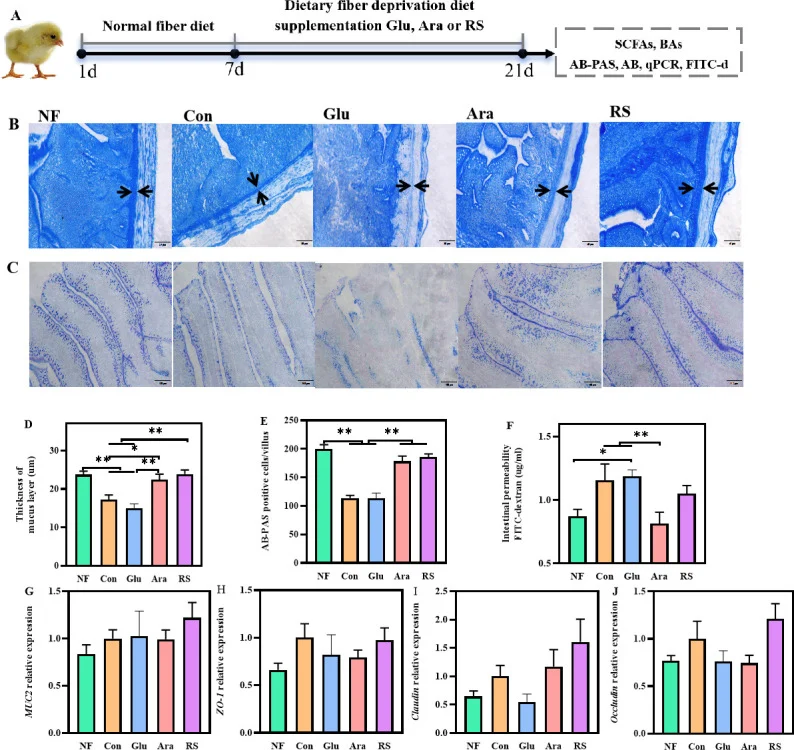
Yang研究提供直接的肉雞組織比較:在纖維缺乏背景下,阿拉伯木聚糖與抗性澱粉組出現較厚的迴腸黏液層及較多染色陽性細胞,β-葡聚糖則沒有相同反應。另一方面,部分屏障相關訊息RNA未達顯著差異,說明分泌與組織變化可以發生於轉錄量未同步改變的情況。比較表達、蛋白與形態,能讓黏液更新的圖像更完整。[1]
3.2 黏液、緊密連接與細胞更新分別支撐屏障
黏液調節腸腔與上皮的接觸,緊密連接則參與相鄰上皮細胞間通透性的調控。Li等人的肉雞化學性腸道損傷研究,觀察到杯狀細胞、MUC2蛋白、緊密連接與腸幹細胞相關指標同時受影響;丁酸介入則伴隨這些指標及上皮形態的恢復。這條證據把黏液研究進一步連到組織更新,提示屏障維持需要分泌與上皮再生共同運作。[3]
4. 跨研究證據:局部屏障反應如何連到生長?
4.1 丁酸可以影響防禦相關表達,但測量層級要對齊
Robinson等人以雞源HD11巨噬細胞及動物試驗研究丁酸與forskolin,觀察到宿主防禦與MUC2等相關基因的反應,且兩種材料合用呈現與單用不同的調節模式。細胞模型提供的是訊號與表達線索;杯狀細胞分泌、實際黏液厚度及整體生長,仍由相應的動物與組織測量回答。這樣的分層比較,也避免將合併材料效果全部歸給丁酸。[2]
4.2 免疫壓力背景下,生長與料重比仍可有不同結果
Wang等人的96隻雄性黃羽肉雞試驗,將丁酸鈉與免疫壓力列為兩個因子,觀察空腸屏障、肝臟代謝及生產結果。壓力組全期日增重為14.05 g/day,合併丁酸鈉組為15.64 g/day;原表字母顯示組間差異。相同研究的全期料重比則未達顯著。這表示改善增重、採食或組織指標,未必等同於每單位增重所需飼料也出現相同改變。[5]
4.3 菌群與活菌介入呈現不同時間及品系依賴
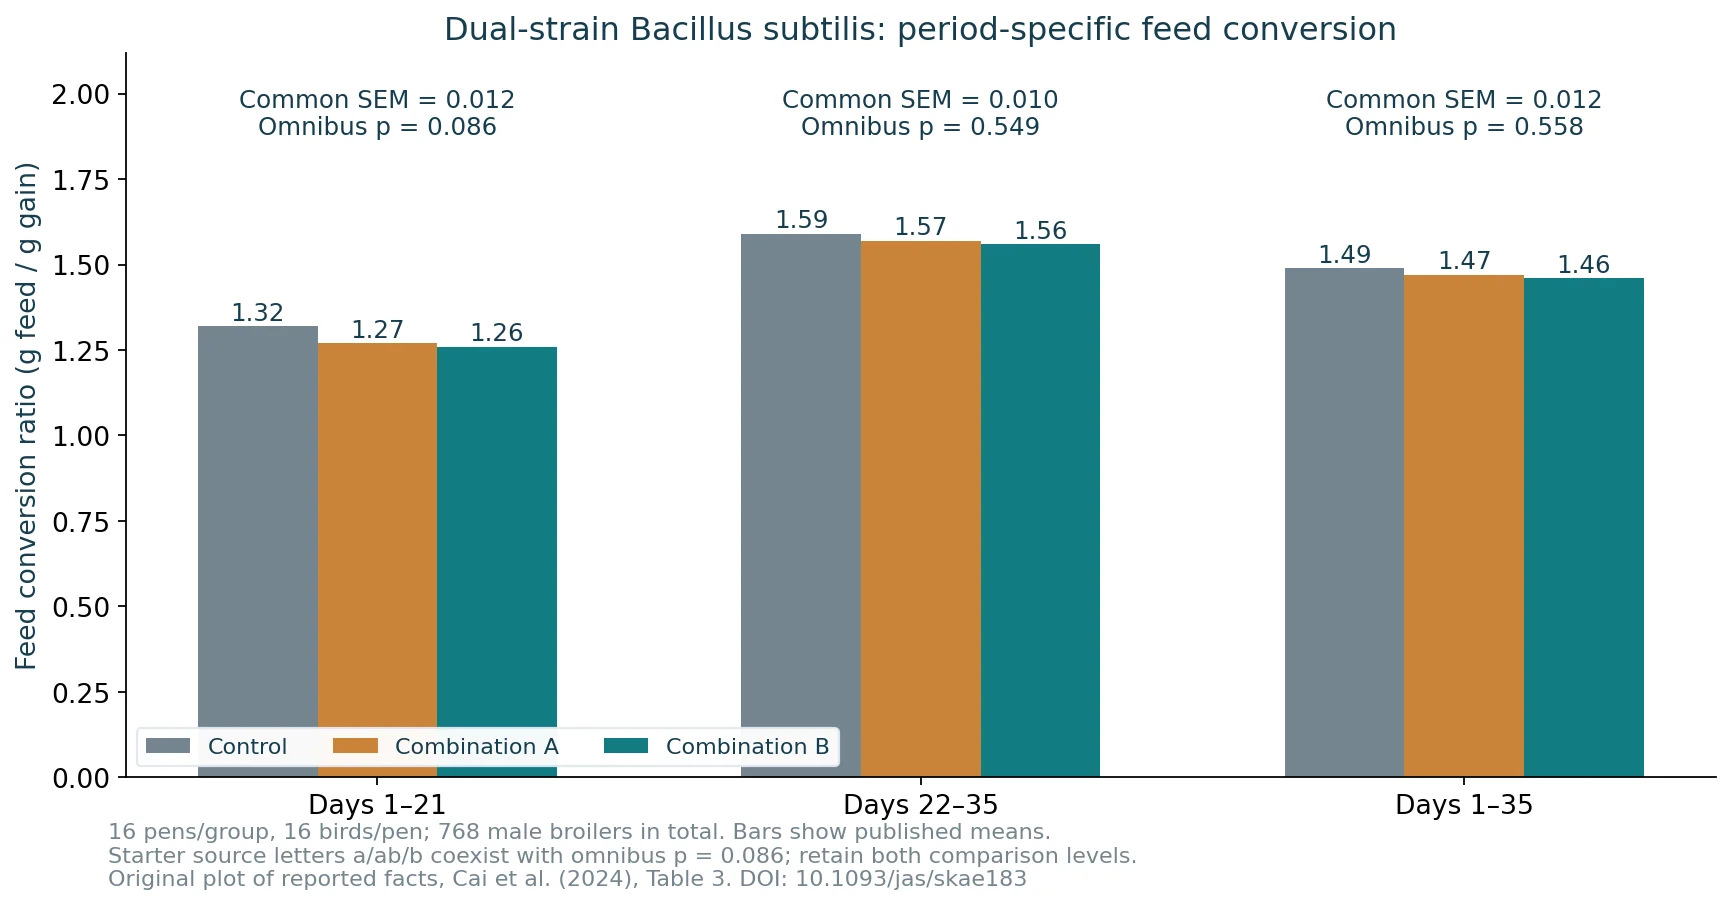
Cai等人對枯草芽孢桿菌雙菌株組合的研究,部分局部腸道指標有反應,但全期FCR三組均值為1.49、1.47與1.46,整體p=0.558。Liu等人的早期整體菌群介入,則在較長生長期雞群觀察到空腸菌群、杯狀細胞與後續體重反應。前者是指定活菌材料,後者是整體群落;材料、腸段與觀察期間不同,正是解釋結果差異的重要條件。[4, 6]
低剩餘採食量群落移植的另一項研究中,受體雞群的菌群及代謝譜發生變化,RFI均值由5.65變為4.49,原文將生產反應描述為趨勢。RFI衡量實際採食與模型預期採食的差值,與FCR回答的問題不同。群落變化有助於定位機制線索,生產效應則需由同一試驗的實際終點判讀。[7]
| 研究類型 | 對象與設計 | 主要觀察 | 整合意義 |
|---|---|---|---|
| 纖維與群落 [1] | 200隻肉雞;不同基質與纖維背景 | 黏液、代謝物及轉錄反應各有差異 | 受測纖維可改變局部介面 |
| 丁酸與forskolin [2] | 雞源細胞及動物比較;分開與合併材料 | 宿主防禦及MUC2相關表達 | 材料組合與測量層級需保留 |
| 丁酸與組織更新 [3] | 24隻肉雞、三組各8隻;化學性腸道損傷 | 杯狀細胞、MUC2、幹細胞及上皮指標 | 提供代謝物—更新的機制線索 |
| 雙菌株活菌 [4] | 768隻、三組各16欄;35天 | 局部腸道反應;全期FCR p=0.558 | 局部與全期結果可不同步 |
| 丁酸鈉與免疫壓力 [5] | 96隻;2×2設計,四組各3重複、每重複8隻 | 壓力下日增重恢復;料重比未顯著 | 宿主背景影響生產反應 |
| 早期群落介入 [6] | 不同品系及較長生長期觀察 | 空腸、杯狀細胞與後續體重 | 材料、日齡與腸段共同解釋 |
| RFI群落介入 [7] | 惠陽鬍鬚雞;不同效率群落 | 群落及代謝譜變化;RFI降低為趨勢 | 生產終點須依原試驗判讀 |
5. 進階整合:上皮—免疫—代謝形成雙向調節
黏液與上皮並非被動接受微生物訊號。免疫細胞對代謝物與局部環境的反應,會連動組織修復與分泌;上皮更新又改變微生物接近宿主的條件。Li研究將丁酸反應連到Wnt/β-catenin與Notch相關訊號及腸幹細胞指標,提供「代謝物—組織更新」的直接研究方向。這些訊號變化需與蛋白、細胞及組織結果共同解釋,而非僅由某個基因上調判定整條路徑已被證明。[3]
另一個延伸是腸道與全身營養分配的關係。Wang研究在同一架構觀察空腸、盲腸及肝臟結果,將局部屏障與脂質代謝、免疫壓力及生長連在一起。由此形成的整合圖像是:宿主狀態與微生物代謝互相影響,生長是多個生理過程累積的表現;黏液層是重要中介介面,但不是全部影響的唯一入口。[5]
6. 應用啟示與研究方向
微生態營養的評估,可從關心的宿主問題出發選擇材料與指標。日糧纖維研究關心基質及群落功能,丁酸鹽研究關心代謝物的提供方式與宿主反應,活菌研究則需要辨認受測材料及其在當下環境中的作用。將材料與問題對齊,比單純追求較多菌種、較高多樣性或單一代謝物濃度,更能解釋結果。[1, 2, 4, 5]
後續研究值得把同一腸段的群落功能、代謝物與黏液更新連續追蹤,再結合採食、增重與FCR,釐清反應發生的先後及持續性。健康與受壓力雞群、短與長生長期品系亦應保留區分,逐步找出哪些機制可重現,哪些需要特定日糧或宿主條件。[3, 5, 6, 7]
7. 結論
家禽微生物代謝可透過局部化學環境、黏液分泌、上皮更新與免疫調節,連結腸道功能及生長表現。現有研究支持多個可對照的作用環節,同時呈現材料與情境差異。將黏液屏障放回營養—微生物—宿主的共同框架,能讓菌相研究更接近功能,也讓應用判斷建立在具體且可追溯的證據上。
💡 常見問題 FAQ
Q1:增加丁酸產生菌,就一定能改善黏液屏障嗎?
需要同時觀察實際代謝物與宿主反應。菌屬比例描述的是群落組成;可利用底物、作用位置與宿主狀態,會影響代謝物的生成及後續表現。Yang研究中,黏液層反應與丁酸濃度並未同步增加。[1]
參考文獻
- Yang J, Qin K, Sun Y, Yang X, Liu J (2023). Microbiota-accessible fiber activates short-chain fatty acid and bile acid metabolism to improve intestinal mucus barrier in broiler chickens. Microbiology Spectrum 12(1): e02065-23. doi:10.1128/spectrum.02065-23
- Robinson K, Yang Q, Li H, Zhang L, Aylward B, Arsenault RJ, Zhang G (2021). Butyrate and Forskolin Augment Host Defense, Barrier Function, and Disease Resistance Without Eliciting Inflammation. Frontiers in Nutrition 8: 778424. doi:10.3389/fnut.2021.778424
- Li R, Quan T, Chen Y, Gao T (2026). Butyrate improves dextran sulfate sodium-induced imbalance of intestinal stem cell homeostasis in broilers. Poultry Science 105(2): 106307. doi:10.1016/j.psj.2025.106307
- Cai Y, Xiao C, Tian B, Dorthe S, Meuter A, Song B, Song Z (2024). Dietary probiotic based on a dual-strain Bacillus subtilis improves immunity, intestinal health, and growth performance of broiler chickens. Journal of Animal Science 102: skae183. doi:10.1093/jas/skae183
- Wang L, Cheng J, Shan X, Shi Y, Wang Q, Pan S, Lu Y (2026). Sodium butyrate ameliorates lipid metabolism disorder, intestinal injury, and microbial dysbiosis in broilers under lipopolysaccharide-induced immune stress condition. Poultry Science 105(2): 106263. doi:10.1016/j.psj.2025.106263
- Liu Q, Akhtar M, Kong N, Zhang R, Liang Y, Gu Y, Yang D, Nafady AA, Shi D, Ansari AR, Abdel-Kafy ESM, Naqvi SUAS, Liu H (2025). Early fecal microbiota transplantation continuously improves chicken growth performance by inhibiting age-related Lactobacillus decline in jejunum. Microbiome 13: 49. doi:10.1186/s40168-024-02021-6
- Xie C, Liang Q, Cheng J, Yuan Y, Xie L, Ji J (2025). Transplantation of fecal microbiota from low to high residual feed intake chickens: Impacts on RFI, microbial community and metabolites profiles. Poultry Science 104(1): 104567. doi:10.1016/j.psj.2024.104567