
豬痢疾(swine dysentery,SD)與豬增生性腸病(porcine proliferative enteropathy,PPE)的研究,需要同時理解病原定位、黏膜功能與腸道環境。短螺旋體主要影響盲結腸黏液與黏膜,胞內勞森菌則感染迴腸隱窩上皮;黏膜損傷或增生都可能降低營養利用,兩者共感染亦可加重疾病表現。介入研究已觀察到指定纖維組合降低豬痢疾發病、共生菌上清抑制短螺旋體,以及複合發酵製劑改善特定勞森菌接種模型的部分腸道指標。這些發現連接病原生態、消化功能與微生物材料,並顯示生長、病原及黏膜終點各有其生物學意義。[1, 2, 3, 5, 6, 7, 8]
病原的生活方式決定主要病變位置
Brachyspira hyodysenteriae 是厭氧螺旋菌,也是典型 SD 的病原。強 β 溶血的 B. hampsonii 與 B. suanatina 也可造成相似疾病,因此檢驗應辨識到適當菌種,而不是將所有 Brachyspira 陽性都稱為豬痢疾。B. pilosicoli 所致的豬腸道螺旋菌病通常呈較輕的結腸炎,須與典型黏液出血性 SD 分辨。[1, 13]
Lawsonia intracellularis 是微需氧的專性胞內菌,主要感染迴腸末端隱窩的增生性上皮,病變也可延伸至空腸或大腸。PPE 可呈亞臨床、慢性生長受損或急性出血形式;未見明顯腹瀉的豬,也可能已有營養利用與生長表現的損失。SD 的黏膜壞死與 PPE 的隱窩增生是鑑別核心,但個別豬的嚴重度仍取決於感染階段與宿主條件。[2, 11]
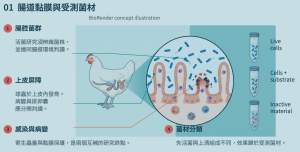
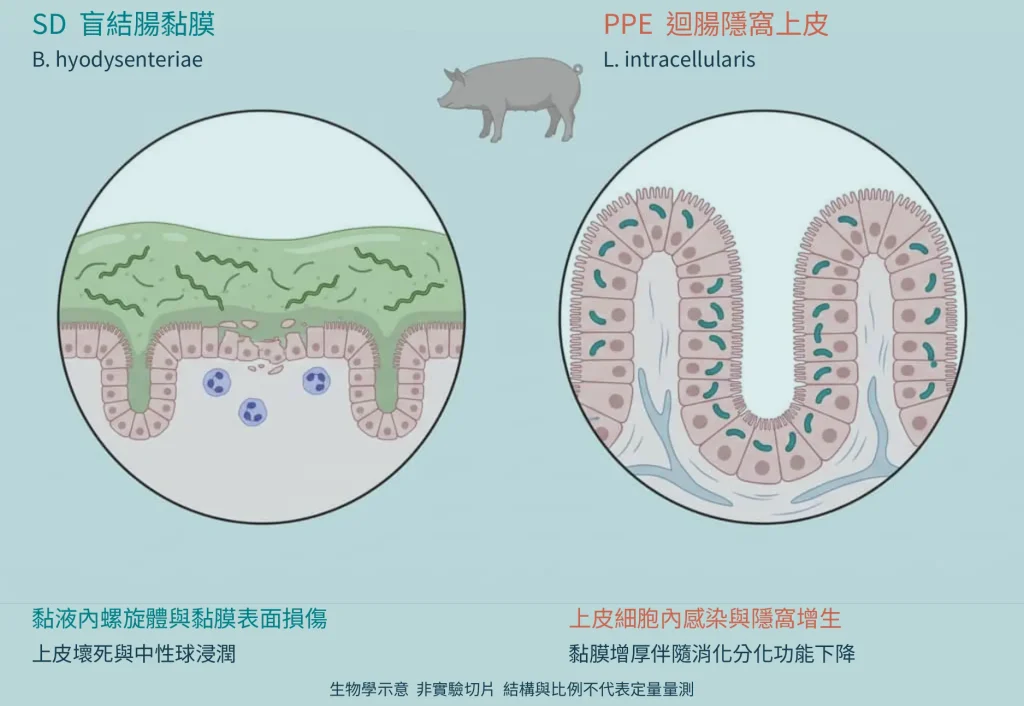
圖一 結腸黏膜損傷與迴腸隱窩增生
原創生物學概念示意,非實驗切片;依 [1,2] 整理。左為短螺旋體所在的盲結腸黏液與表面損傷,右為勞森菌的隱窩上皮細胞內感染與增生。無實驗樣本或統計檢定;HYGEM 以 BioRender 製作並加中文註解。
左圖的腸腔黏液環境與右圖的胞內感染靶點不同。這項差異有助於解釋為何上清抑菌、黏膜保護與疾病終點需要分開測量。
豬痢疾的黏液屏障與炎症變化
短螺旋體與結腸黏液層的互動,使 SD 的致病過程不只是一項糞便菌量變化。Lin 等人的豬隻研究觀察到黏蛋白糖基化重整、岩藻糖表現增加,以及發病期糞便與結腸 MUC5AC 增加;日糧可發酵纖維條件亦影響部分變化。這些結果連結菌體定殖、黏液環境與局部免疫,但糞便 MUC5AC 的疾病預測能力有限,尚不能代替病原檢驗。[12]
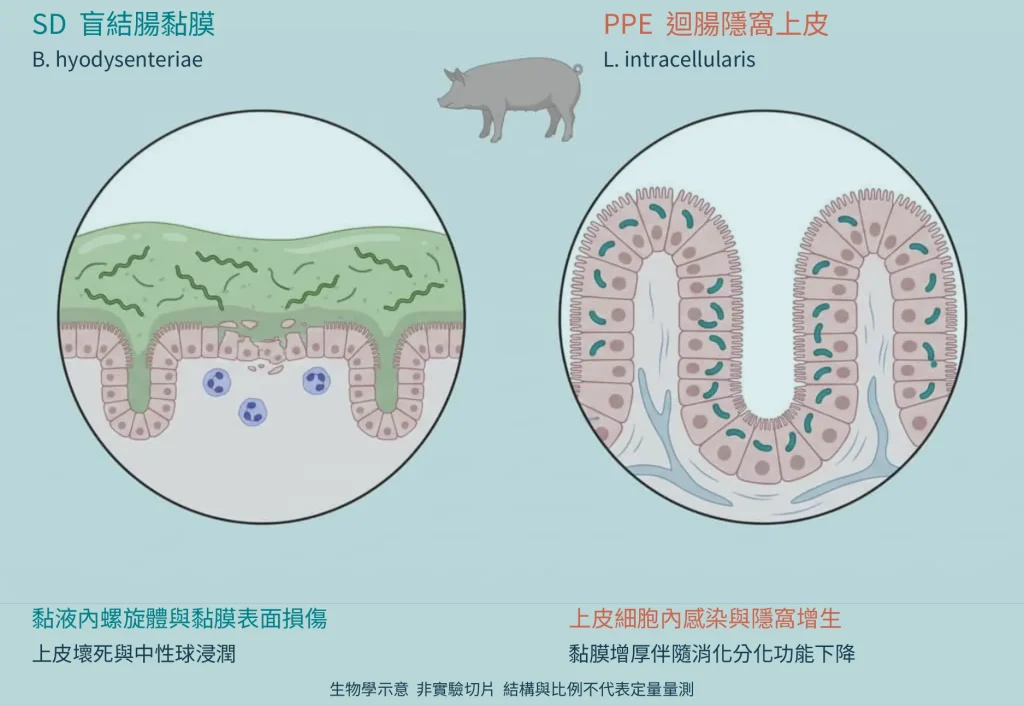
Pérez-Pérez 等人在 32 頭豬的攻毒研究中,以首次糞便 qPCR 陽性後 24 小時與急性血黏液便分別取樣。原始病理圖顯示早期已有上皮損傷,急性期則出現更嚴重壞死與炎症浸潤。qPCR 首次陽性到血黏液便多相隔 0–3 日,另有一頭為 5 日;這說明該模型中可供辨識的臨床前窗口很短,不能期待外觀正常就代表未排菌。[1]
圖二 豬痢疾早期與急性期的原始病理圖
原圖完整保留 Pérez-Pérez 等(2024)Figure 2,CC BY 4.0,doi:10.1186/s40813-024-00375-9。豬隻試驗:未感染對照 n=16、早期感染 n=8、急性感染 n=8;圖片為代表性個案。A/D/G 為對照,B/E/H 為早期,C/F/I 為急性;D–I 為 H&E 染色,保留原倍率/比例尺及箭頭。此為病理影像,無另加數據檢定。
由左至右比較感染階段,急性組可見更嚴重的充血、壞死與炎症細胞浸潤。這組原始影像將結腸病變對回感染階段,不能單靠圖片反推出整場的發病比例。
增生的腸黏膜為何仍會降低營養利用
PPE 的黏膜增厚並不等於吸收能力增加。Helm 等人以每組 12 頭豬比較未感染、感染未免疫與免疫後感染三組,發現受感染病灶中蔗糖酶—異麥芽糖酶轉錄訊號近乎消失。這項酵素定位結果,連同全消化道養分消化率下降,支持病灶上皮偏向未成熟增生狀態,而非形成正常消化表面。[2]
同一研究攻毒後 0–19 日平均日增重依序為 1.27、0.75、1.02 kg/日,三組間均有顯著差異;口服減毒活疫苗組的生長表現部分改善,仍低於未感染組。氮的全消化道表觀消化率則為 80.3%、73.9%、76.3%,免疫後感染組與感染未免疫組未達顯著差異。生長恢復與特定養分消化指標因此應各自解釋,不能互相替代。[2]
共感染使兩種不同腸道靶點產生交互影響
Daniel 等人將 45 頭仔豬分為共感染 12 頭、短螺旋體單感染 11 頭、勞森菌單感染 11 頭及陰性對照 11 頭;先接種勞森菌,再於第 7–9 日接種短螺旋體。共感染組在第 18 日後的糞便評分高於其他組,且有較多大腸肉眼病灶。部分組織終點與短螺旋體單感染組並未顯著不同,顯示交互影響具有終點差異。作者提出的免疫抑制解釋仍屬機制假說,實際測得的核心是此感染順序下的疾病加重。[3]
菌群與日糧共同塑造發病條件
2026 年兩場田間追蹤研究,以 13 頭發病豬及 13 頭未發病豬的 102 份糞樣進行宏基因組分析,觀察到發病前的菌群差異;其中多樣性降低的表現具有場別差異。這種縱向資料比單次發病後採樣更接近易感性問題,但仍須連同日糧、場域及用藥歷程理解。相對豐度也不是菌株功能的直接替代指標:Daniel 的共感染研究中,較嚴重的共感染組相較短螺旋體單感染組,亦有較高 Lactobacillus 相對豐度。[3, 4]
Helm 等人以 39 頭單欄飼養豬比較三種日糧,每組起始 13 頭,以甜菜粕及抗性馬鈴薯澱粉逐步取代玉米酒糟。42 日內臨床 SD 發病率依低、中、高可發酵纖維組為 85%、46%、15%(p=0.002)。短螺旋體培養陽性比例並無組間差異,說明降低發病可在仍有定殖的情況下發生。此結果支持特定纖維組合改變疾病表現,並不等於增加任意纖維都產生相同效果。[5]
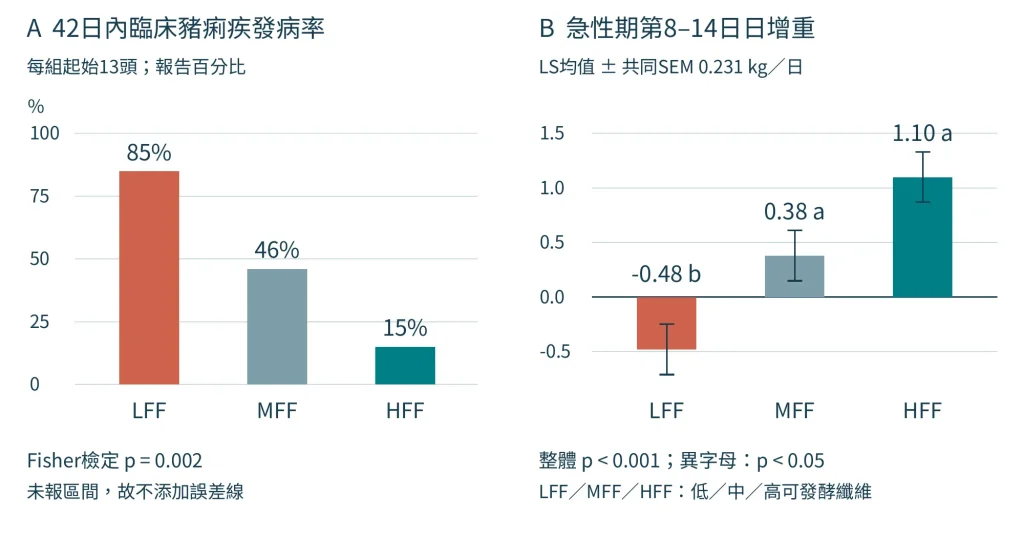
圖三 指定纖維組合對豬痢疾發病與急性期增重的影響
依 Helm 等(2021)Results 3.1 與 Table 2 自繪;doi:10.3390/ani11020396,CC BY 4.0。39頭單欄豬,起始每組13頭。LFF/MFF/HFF:低/中/高可發酵纖維日糧,甜菜粕與抗性馬鈴薯澱粉逐步取代玉米酒糟。A:0–42日報告發病率85%、46%、15%;Fisher檢定p=0.002,未報區間,不添加誤差線。B:第8–14日ADG為−0.48、0.38、1.10 kg/日;LS均值±共同SEM 0.231,整體p<0.001;異字母p<0.05。MFF一頭於第10日死亡,原分析有納入處理;LFF四頭曾接受救援抗菌治療。
A 圖顯示在這組原料替換條件下,臨床發病比例隨日糧組別不同。B 圖聚焦急性期:低可發酵組出現負日增重,中、高組較佳;這是同一次試驗的兩個終點,不是兩項獨立驗證。
乳酸菌與無細胞上清提供哪些直接證據
Gómez-Martínez 等人以 28 株厭氧共生菌與 B. hyodysenteriae B204 共培養。研究中的 L. amylovorus、Limosilactobacillus mucosae 及 Lactiplantibacillus plantarum 分離株,在 96 小時的 qPCR 估算菌量相較病原單培養對照分別降低約 1.86、1.78、1.53 log₁₀/mL。這些數值描述體外生長抑制,不是豬場減排菌率;不同分離株及時間的抑制動態也不同。[6]
無細胞上清(cell-free supernatant,CFS)試驗進一步提供機制線索。部分上清在中和至 pH 7.0 後仍保留抑制活性,包括上述黏膜乳桿菌與植物乳桿菌材料,顯示部分作用不限於培養液酸化。研究亦量測乳酸與短鏈脂肪酸;這些成分與抑制結果的連結支持後續活性解析,但尚未以單一分子救援或阻斷實驗確立主要效應物。對菌株開發而言,中和前後的比較比只量抑菌圈更能辨識作用來源。[6]
複合發酵製劑的豬體資料須保留材料與模型身分
Xu 等人的 FAM 含活乳酸桿菌、芽孢桿菌及其發酵產物,屬複合益生菌發酵製劑。24 頭仔豬分為未接種、勞森菌接種、FAM 加接種及疫苗加接種四組,每組 6 頭。原文接種材料列為商用 Enterisol Ileitis 減毒疫苗,接種後第 11 日採樣;因此這是該接種模型下的結果,與野外強毒株攻毒應分別看待。[7]
研究觀察到 FAM 組較接種未介入組有較佳日增重,以及較少迴腸勞森菌 RNA 訊號、較多杯狀細胞與 MUC2 表現,並伴隨血清腸道通透性相關指標改善。其生物學意義在於病原定位、黏液屏障及生長可同時改變;但效果應歸於整體 FAM。每組僅一欄,也使日糧處理與欄位效應無法獨立區分,限制了對生產效果的因果估計。[7]
表一 核心研究的材料與實際終點
| 材料與來源 | 研究情境 | 主要發現及判讀 |
|---|---|---|
| 乳酸菌等共生菌/CFS [6] | 體外共培養、上清濃度與pH比較;每條件3重複 | 抑制病原qPCR估算量;部分中和後保留活性;未完成豬場效果試驗 |
| FAM 複合活菌發酵製劑 [7] | 24頭、4組各6頭、每組1欄;減毒疫苗材料接種 | 生長、RNA訊號、杯狀細胞及MUC2改善;材料與欄位不可拆開歸因 |
| P/S有機酸;D植物;F真菌發酵黑麥 [8] | 離體結腸;短螺旋體供體共10頭,勞森菌5頭 | 依材料、時點與病原有不同上皮/發炎結果;不是同一後生元類別 |
| 芽孢桿菌來源表面活性素 [9] | 體外抑菌與電子顯微鏡;實驗3重複 | 形態受損與生長抑制;沒有同篇豬體減排菌試驗 |
依原文方法及結果整理;豬、欄、供體組織與培養重複為不同實驗單位。
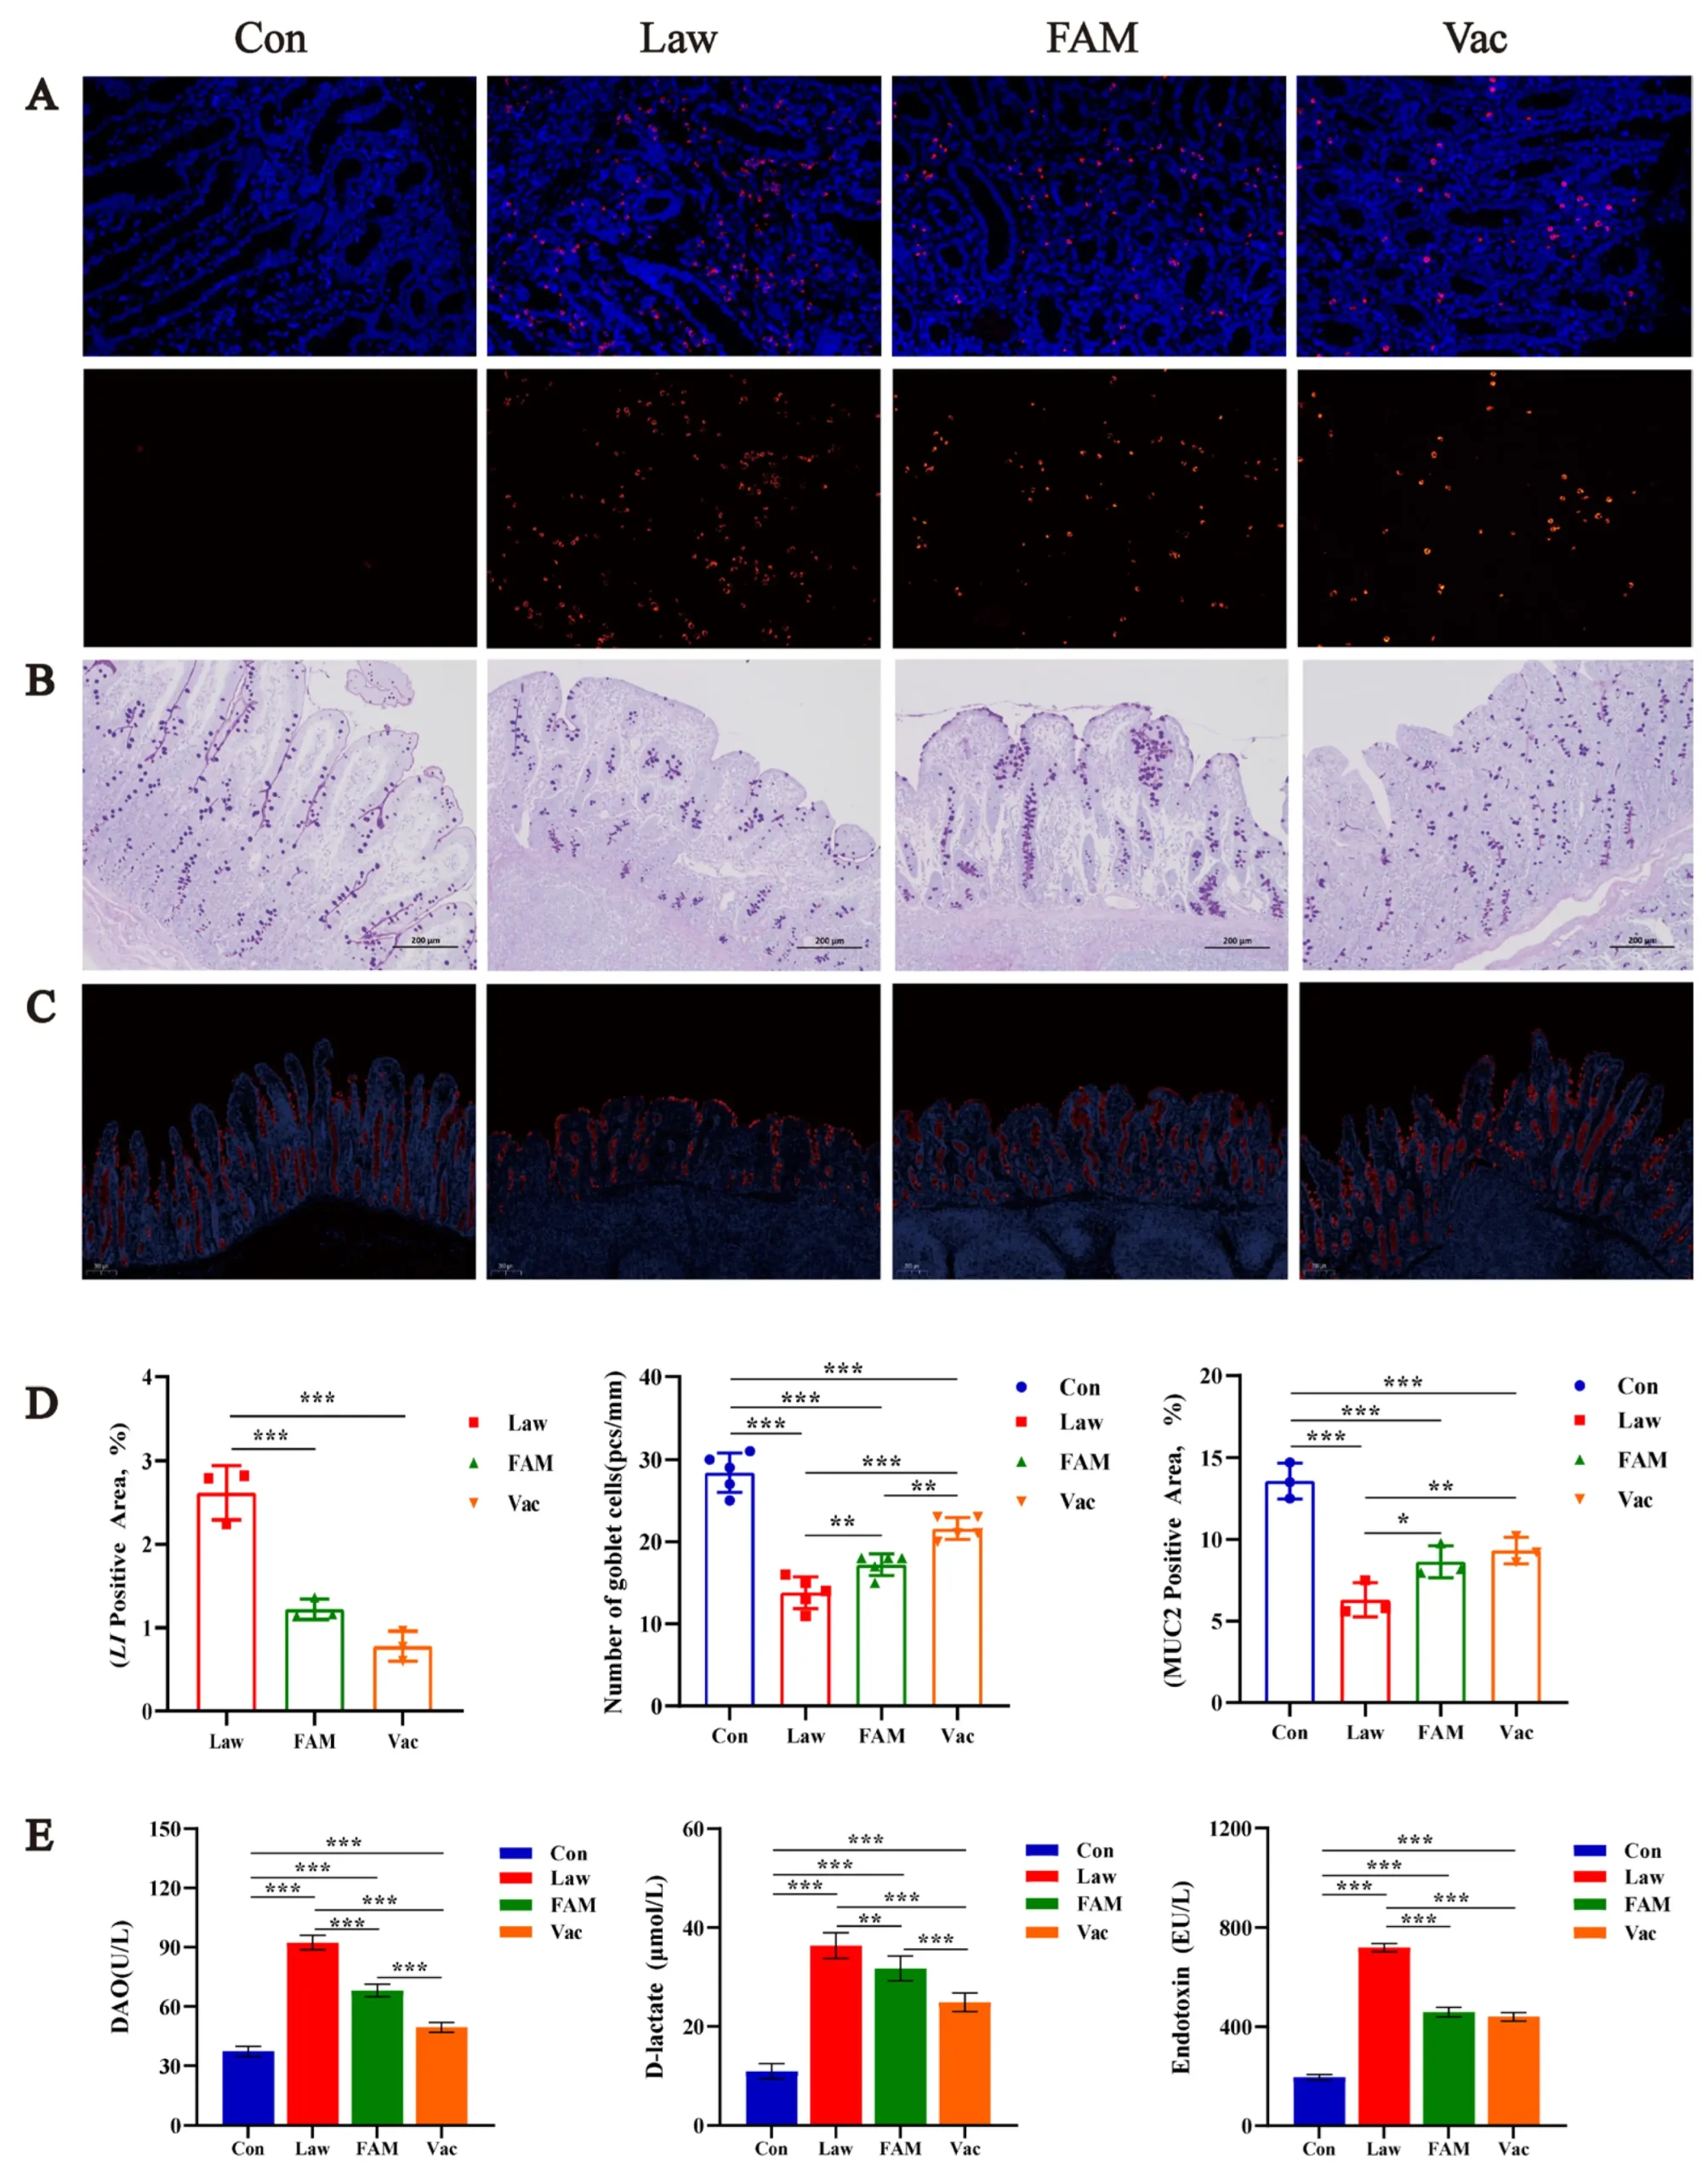
圖四 FAM 模型中的病原 RNA 訊號與黏膜相關指標
Xu 等(2023)原 Figure 6;doi:10.3390/biology12060879,CC BY 4.0。整體24頭、每組6頭且每組1欄:Con未接種、Law接種、FAM製劑加接種、Vac疫苗加接種。接種材料為商用減毒疫苗。A:勞森菌RNA原位雜交,紅為陽性、藍為DAPI;B:PAS杯狀細胞;C:MUC2;D:訊號面積及杯狀細胞定量;E:DAO、D-乳酸與內毒素。B/C比例尺200 μm,保留原圖尺度。原方法報均值±SD;*p<0.05、**p<0.01、***p<0.001。D/E各指標可見3或6個散點,子樣本與視野重複關係原文未充分交代,不統稱每圖n=6。
A/D 的 FAM 組勞森菌 RNA 訊號較 Law 組少;B–D 的杯狀細胞與 MUC2 指標較佳,但未全數回到 Con 水準。E 呈現血清通透性相關指標,並非直接測得的全腸通透率;這組影像和數值支持該複合製劑在此接種模型中的黏膜相關作用。
上皮保護與直接抑菌是不同作用層次
de Groot 等人的離體豬結腸研究,將病原單獨暴露、材料單獨暴露及兩者共同暴露分開比較。對短螺旋體試驗,含短鏈與中鏈脂肪酸的 P 材料在部分條件下減少黏液厚度,並有較佳上皮覆蓋或較低 TNF-α 訊號;角豆樹與百里香萃取物、真菌發酵黑麥則有不同反應。尤其真菌發酵材料在勞森菌與短螺旋體情境下並非一致,顯示材料效果取決於病原、比較組與時間點。[8]
這項研究的供體與組織塊須分開計數:勞森菌使用 5 頭供體,短螺旋體因材料分批共使用 10 頭;每頭多塊組織並非多頭獨立豬。原圖另以雙星標示 p=0.06,依其 α=0.05 門檻應解讀為趨勢。相較之下,Horng 等人的表面活性素研究以抑菌試驗及掃描電子顯微鏡顯示短螺旋體形態受損,支持直接作用於菌體的體外證據;其材料是芽孢桿菌來源脂胜肽,而非乳酸菌製劑。[8, 9]
後生元分類與綜合防控的研究定位
依 ISAPP 共識,後生元是能帶來宿主健康效益的失活微生物及/或其組分製劑,可伴隨代謝產物。含活菌的 FAM、無細胞上清及純化脂肪酸應各按實際材料命名;植物萃取物、礦物材料與宿主防禦素另屬其他研究類別。這種分類能保留活性來源及製程差異,也讓菌株、發酵物與後生元的效果比較更有意義。[10]
表二 研究材料的命名與作用層次
| 研究材料 | 應保留的辨識資訊 | 可回答的主要問題 |
|---|---|---|
| 活菌與複合發酵製劑 | 菌株、活菌量、發酵基質及共存成分 | 整體製劑在指定模型的作用 |
| 無細胞上清 | 去菌方法、濃度、pH與培養基對照 | 可溶性抑制作用與酸化的關係 |
| 符合定義的後生元 | 失活流程、菌體/組分、宿主效益 | 指定失活製劑的健康作用 |
| 純化代謝物及其他材料 | 化學身分、來源與純度;植物/礦物/宿主來源分列 | 明確分子或材料的直接功能 |
分類依 [10] 與本篇材料身分;上清或代謝物不因微生物來源就自動符合後生元定義。
田間研究提供疾病終點的另一項基準。一項 3,261 頭隨機盲性試驗中,皮內不活化勞森菌疫苗組的勞森菌相關死亡率為 0.45%,對照為 1.65%(p=0.0022)。這項疫苗與場域的死亡結果,與前述消化、生長或發酵製劑試驗各自回答不同問題,應依其對照及終點解釋。[11]
綜合現有資料,乳酸菌與發酵材料最具研究價值的作用層次包括病原競爭、可溶性抑制活性、黏液與上皮功能,以及營養條件對發病的調節。實際防控仍需將這些材料放回病原診斷、日糧、疫苗及生物安全的共同框架;材料特定的結果,才能形成可比較、可重現的技術依據。
常見問題
發酵製劑等於後生元嗎?須依活菌狀態、菌體組分與製備資料分類;FAM 的研究結果描述的是複合活菌發酵製劑。[7, 10]
發病率下降代表清除短螺旋體嗎?Helm 試驗中,發病率下降而培養陽性比例無組間差異,兩個終點應分別判讀。[5]
圖源與使用註記
圖一為 BioRender 概念插畫;圖二為 [1] 原Figure 2;圖三依 [5] 結果及Table 2自繪;圖四為 [7] 原Figure 6。圖二至四來源採 CC BY 4.0。原圖、原表與 DOI 見圖說及下列文獻。
參考文獻
- Pérez-Pérez, Lucía; Carvajal, Ana; Puente, Héctor; Peres Rubio, Camila et al. (2024). New insights into swine dysentery: faecal shedding, macro and microscopic lesions and biomarkers in early and acute stages of Brachyspira hyodysenteriae infection. Porcine Health Management 10(1):24. DOI: 10.1186/s40813-024-00375-9
- Helm, Emma T.; Burrough, Eric R.; Leite, Fernando L.; Gabler, Nicholas K. (2021). Lawsonia intracellularis infected enterocytes lack sucrase-isomaltase which contributes to reduced pig digestive capacity. Veterinary Research 52(1):90. DOI: 10.1186/s13567-021-00958-2
- Daniel, Amanda G. S.; Pereira, Carlos E. R.; Dorella, Fernanda; Pereira, Felipe L. et al. (2023). Synergic Effect of Brachyspira hyodysenteriae and Lawsonia intracellularis Coinfection: Anatomopathological and Microbiome Evaluation. Animals 13(16):2611. DOI: 10.3390/ani13162611
- Pérez-Pérez, Lucía; Arguello, Héctor; Cobo-Díaz, José F.; Galisteo, Cristina et al. (2026). From predisposition to recovery: field evidence of interactions between the gut microbiota and Brachyspira hyodysenteriae infection. Veterinary Research 57(1):25. DOI: 10.1186/s13567-025-01646-1
- Helm, Emma T.; Gabler, Nicholas K.; Burrough, Eric. R. (2021). Highly Fermentable Fiber Alters Fecal Microbiota and Mitigates Swine Dysentery Induced by Brachyspira hyodysenteriae. Animals 11(2):396. DOI: 10.3390/ani11020396
- Gómez-Martínez, Samuel; Pérez-Pérez, Lucía; Ucero-Carrretón, Alejandro; López-García, Álvaro et al. (2026). Exploring the potential for competitive exclusion of commensal probiotic candidates against the insidious swine pathogen Brachyspira hyodysenteriae. Animal Microbiome 8(1):19. DOI: 10.1186/s42523-025-00511-y
- Xu, Tingting; Guo, Yong; Zhang, Yuanyuan; Cao, Kai et al. (2023). Alleviative Effect of Probiotic Ferment on Lawsonia intracellularis Infection in Piglets. Biology 12(6):879. DOI: 10.3390/biology12060879
- de Groot, Nienke; Meneguzzi, Mariana; de Souza, Barbara; de O. Costa, Matheus (2022). In Vitro Screening of Non-Antibiotic Components to Mitigate Intestinal Lesions Caused by Brachyspira hyodysenteriae, Lawsonia intracellularis and Salmonella enterica Serovar Typhimurium. Animals 12(18):2356. DOI: 10.3390/ani12182356
- Horng, Yi-Bing; Yu, Yu-Hsiang; Dybus, Andrzej; Hsiao, Felix Shih-Hsiang et al. (2019). Antibacterial activity of Bacillus species-derived surfactin on Brachyspira hyodysenteriae and Clostridium perfringens. AMB Express 9(1):188. DOI: 10.1186/s13568-019-0914-2
- Salminen, Seppo; Collado, Maria Carmen; Endo, Akihito; Hill, Colin et al. (2021). The International Scientific Association of Probiotics and Prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics. Nature Reviews Gastroenterology & Hepatology 18(9):649–667. DOI: 10.1038/s41575-021-00440-6
- Jacobs, A. A. C.; Harks, F.; Pauwels, R.; Cao, Q. et al. (2020). Efficacy of a novel intradermal Lawsonia intracellularis vaccine in pigs against experimental infection and under field conditions. Porcine Health Management 6(1):25. DOI: 10.1186/s40813-020-00164-0
- Lin, Susanne Je-Han ; Helm, Emma T. ; Gabler, Nicholas K. ; Burrough, Eric R. (2023). Acute infection with Brachyspira hyodysenteriae affects mucin expression, glycosylation, and fecal MUC5AC. Frontiers in Cellular and Infection Microbiology 12:1042815. DOI: 10.3389/fcimb.2022.1042815
- Hakimi, Maria; Ye, Fangshu; Stinman, Chloe C.; Sahin, Orhan et al. (2024). Antimicrobial susceptibility of U.S. porcine Brachyspira isolates and genetic diversity of B. hyodysenteriae by multilocus sequence typing. Journal of Veterinary Diagnostic Investigation 36(1):62–69. DOI: 10.1177/10406387231212189
本文為敘述性科學綜述,供研究與技術交流。個案診斷與控制須依實際病原及場域資料判讀。