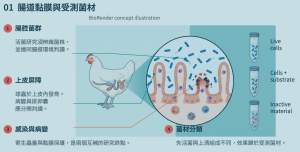
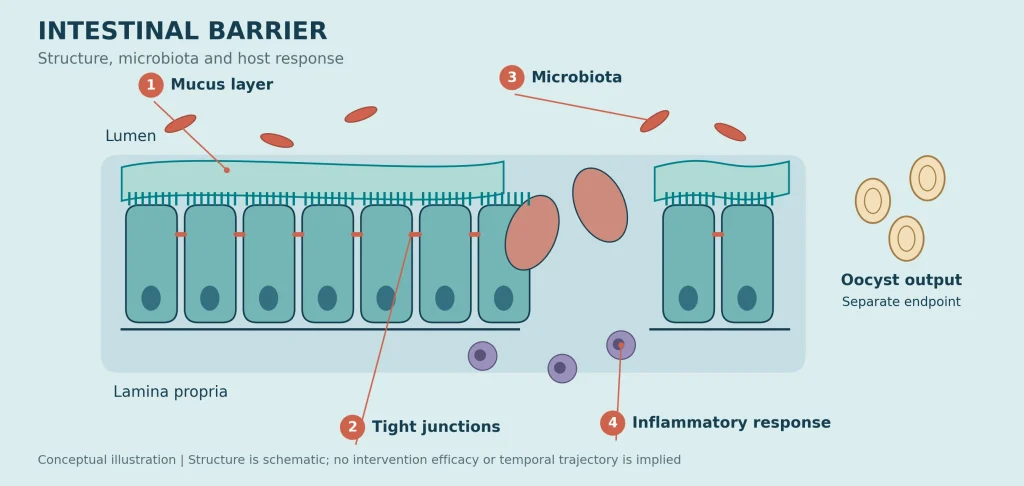

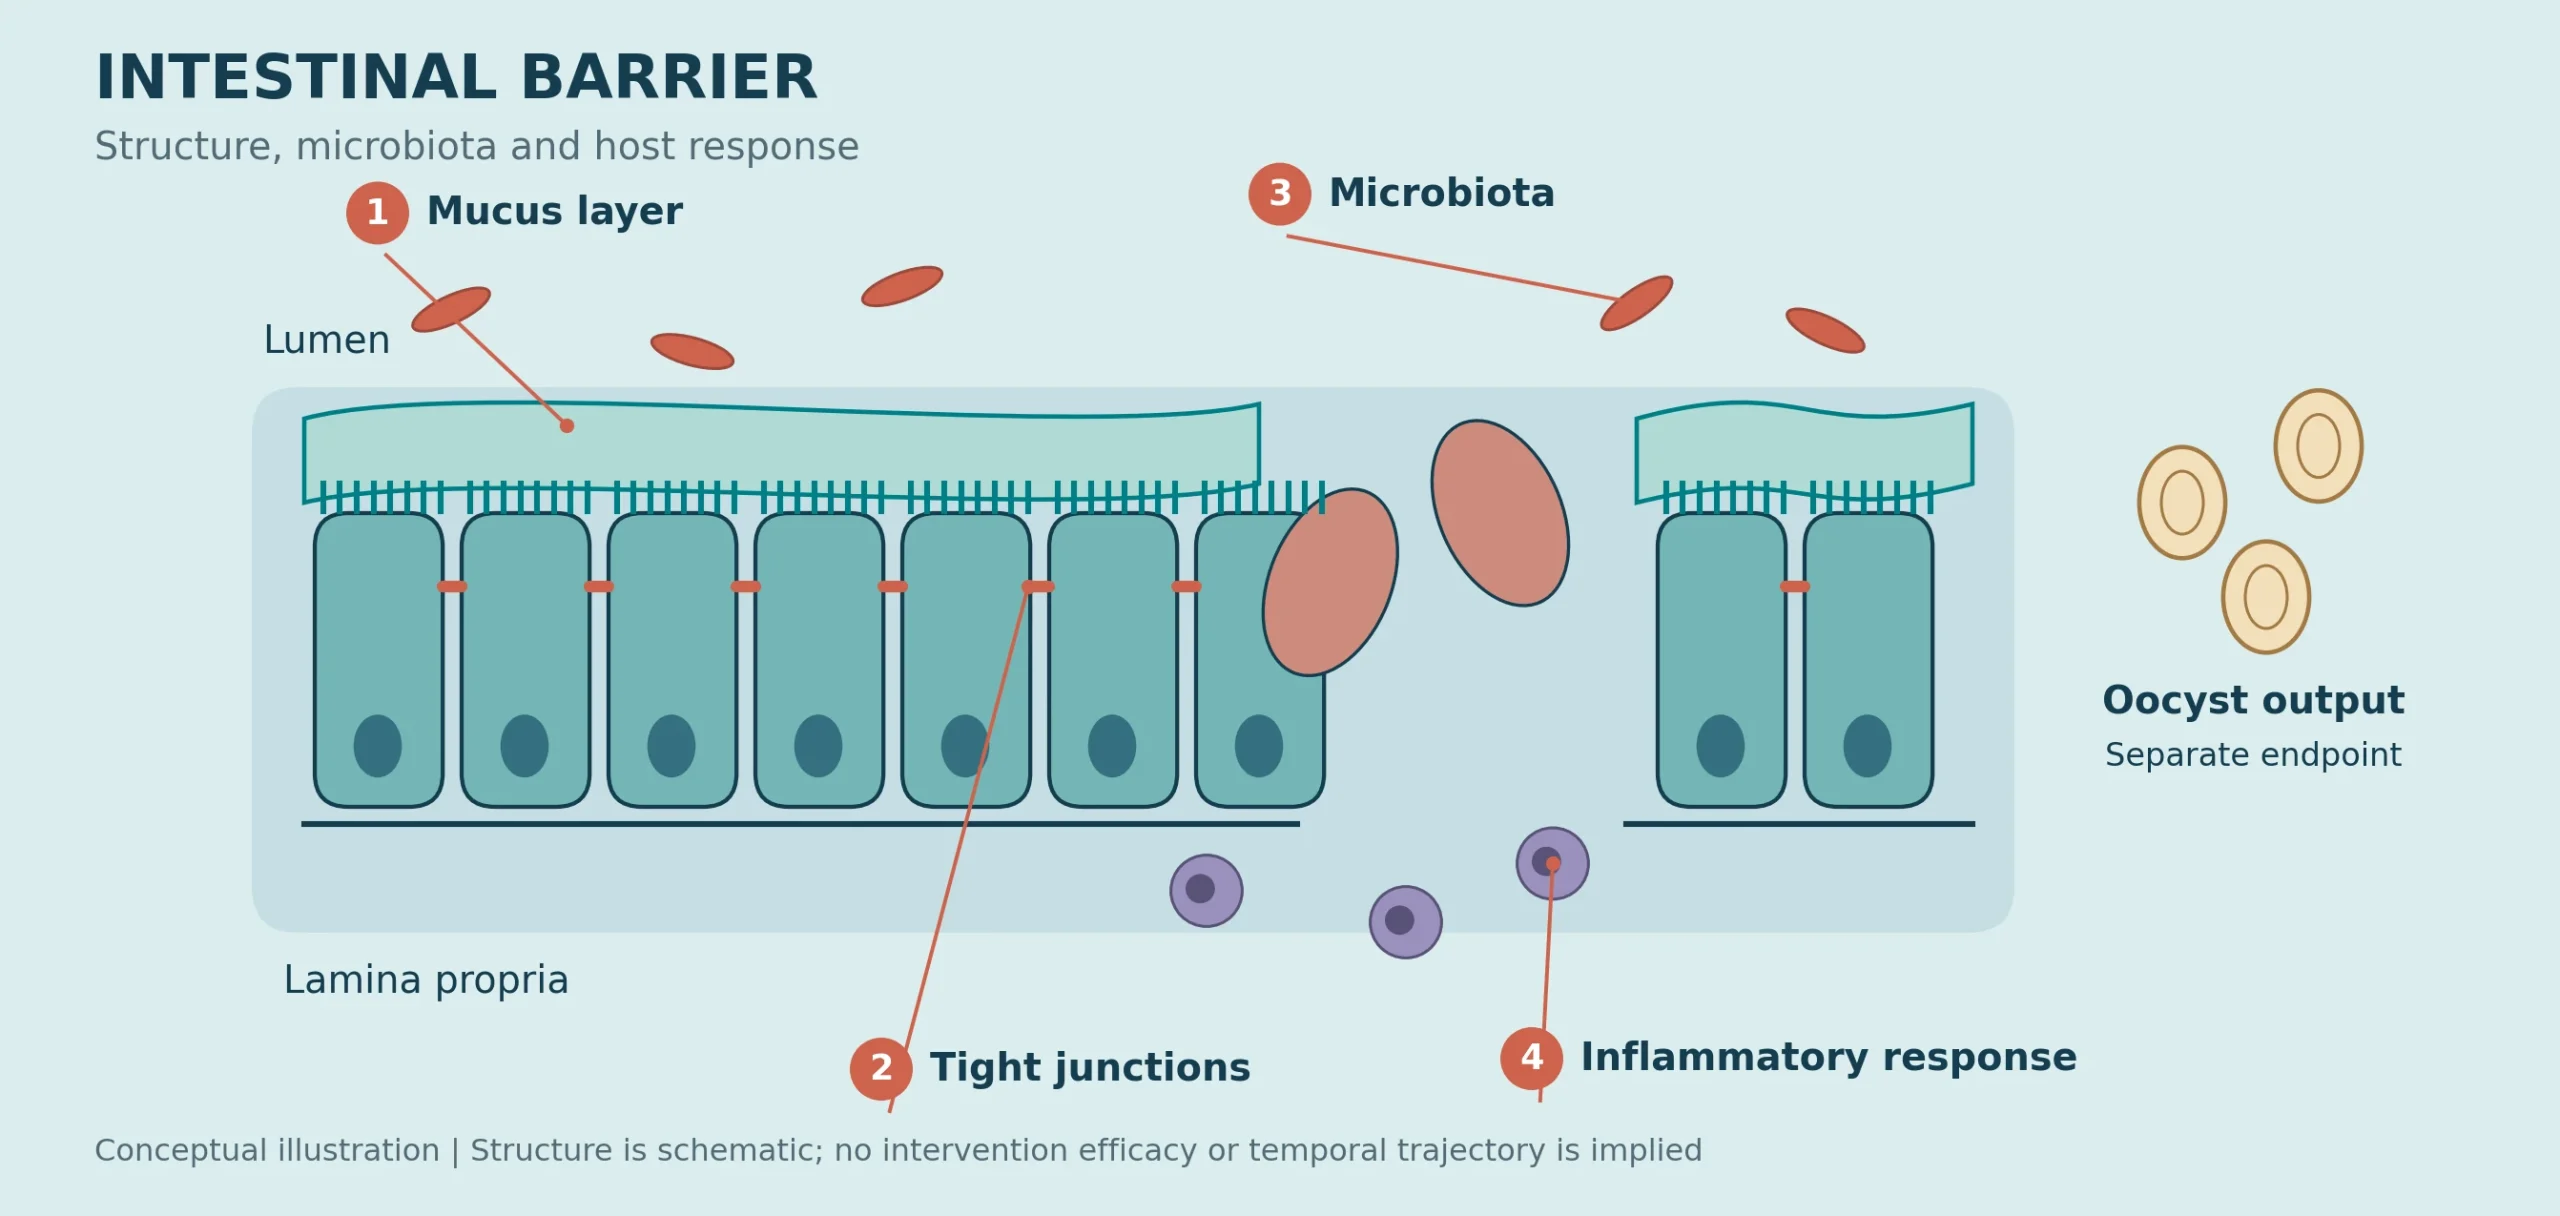
球蟲感染後,卵囊排出量、腸道病變與屏障修復分別反映寄生蟲排出、組織受損及宿主功能。這些變化可以相關,卻不必同步。雞隻研究已顯示,微生物背景能改變病變程度;乳酸菌與其他微生物材料也可能影響緊密連接及炎症反應。理解這些研究,需要把寄生蟲、菌群與上皮三者放在同一個生物學框架,並保留各終點的意義。[1, 2, 3, 4]
從黏液層到上皮:球蟲損傷的是一整套屏障
家禽不同艾美耳球蟲具有腸段偏好:E. acervulina 主要涉及十二指腸及近端小腸,E. maxima 主要涉及中段小腸,E. tenella 則以盲腸為主。感染造成上皮細胞受損、絨毛變短或脫落,並伴隨局部炎症。相同糞便卵囊讀值,因此可能來自不同腸段與不同組織損傷背景,不能直接換算成相同的吸收功能。[1]
黏液層、杯狀細胞與緊密連接共同維持腸腔和組織之間的界面。Choi 等人的 E. tenella 研究發現,盲腸杯狀細胞數與腸內容物黏液濃度下降,但 MUC2 的轉錄反應呈非線性變化。黏蛋白基因訊號可以反映補償反應,並不等同已形成連續、完整的黏液覆蓋;要理解化學屏障,仍須連同杯狀細胞與實際黏液狀態判讀。[2]
表一 屏障研究的四個量測層次
| 量測層次 | 主要資料 | 能回答的問題 | 判讀重點 |
|---|---|---|---|
| 寄生蟲排出 | 糞便 OPG/總排出量 | 排出是否改變 | 不同時間與分母不可直接互換 |
| 黏液與組織 | 杯狀細胞、黏液、組織形態 | 覆蓋與上皮是否受損 | MUC2 mRNA 不等於分泌量 [2] |
| 連接組分 | ZO-1、CLDN、Occludin | 轉錄與蛋白如何變化 | 表達方向不能單獨證明功能 [1, 3] |
| 功能層次 | FITC-d、間接血清指標 | 滲漏與屏障狀態如何 | 分開直接通透性與間接標誌 [1, 4] |
菌群不只是受害者,也參與病變形成
Tomal 等人比較一般菌群雞、無菌雞及重新引入菌群的雞隻,在感染後第 7 日寄生蟲負荷相近的條件下,無菌雞的盲腸病變較少;重新引入一般雞菌群後,病變與黏膜受損增加。這項研究藉由改變微生物背景,直接支持菌群參與感染病理,而不只是從定序結果推測關聯。[3]
一般菌群雞的反應同時包括炎症細胞浸潤,以及 IL18、PTGS2 等炎症相關訊號較高。研究中還觀察到較頻繁的脾臟腸桿菌檢出:感染一般菌群雞為 4/7,未感染一般菌群雞為 1/11。這是小樣本的細菌移位觀察,不是整場繼發感染率;它將上皮破損與腸腔菌跨越屏障的風險連接起來。無菌模型的價值在辨識機制,不能據此推導清除全部菌群的養殖策略。[3]
通透性上升,緊密連接基因卻未必下降
Graham 等人的混合球蟲感染研究,在感染後第 6 日測得血清 FITC-d 均值由未感染組的 34.22 上升至 229.50 ng/mL,顯示腸道通透性增加。然而,迴腸 ZO-1 與 OCLN 的相對 mRNA 均值均為對照的 0.88 倍,組間差異未達顯著。功能已改變,單一轉錄指標卻未必同步改變,這正是多層次判讀的必要性。[1]
緊密連接的功能也取決於蛋白量、細胞內定位、連接的連續性,以及上皮是否完整。另一個例子是 Tomal 研究中的 CLDN1:嚴重病變伴隨其轉錄升高,而非單向下降。因此,不能將所有緊密連接基因的「上升」一律寫成保護,也不能由「未達顯著」認定屏障正常。[1, 3]
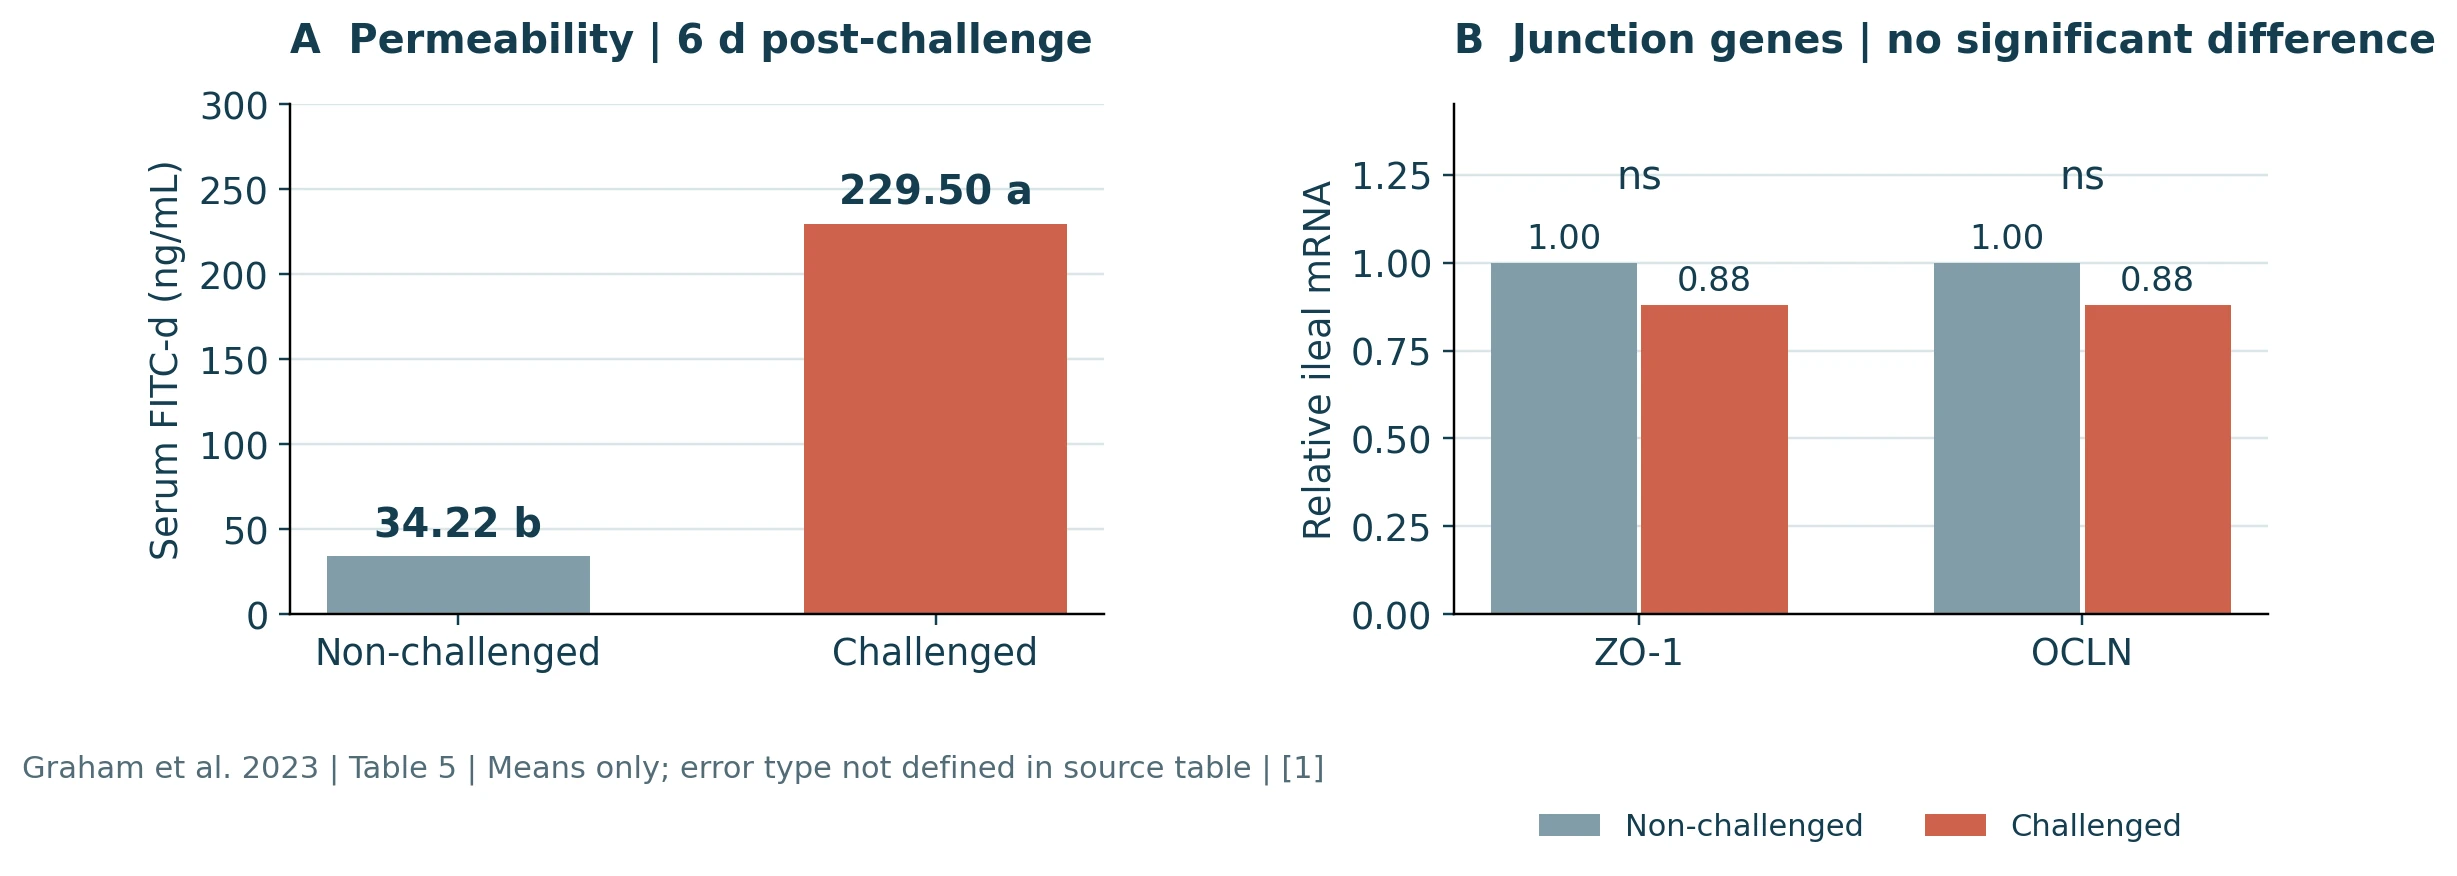
依 Graham 等(2023)Table 5 的均值自繪;左為血清 FITC-d,右為迴腸相對 mRNA。感染後第 6 日;起始未感染 5 欄、感染 7 欄,FITC-d 方法記載每欄取 4 隻,基因表達 n=8/組。原表 ± 未清楚定義誤差類型,本圖只畫均值、不補誤差線。不同字母代表組間 p<0.05;ns 為未達顯著。CC BY 4.0。[1]
血清 FITC-d 上升,而 ZO-1、OCLN 未達組間顯著差異。單一 mRNA 指標不能取代功能測量。
P8:寄生蟲排出、病變與屏障指標的變化幅度不同
Wang 等人的植物乳桿菌 P8 研究設有未感染、感染、兩個 P8 組及地克珠利組。感染後第 5 日,感染組的 OPG 為 11.96×10⁵/g,P8L、P8H 與藥物組依序為 4.52、1.28 與 0.55×10⁵/g。P8H 和藥物組的 OPG 共享統計字母,但盲腸病變分數分別為 1.27 與 0.40,且差異顯著;P8L 為 1.09,感染組為 2.36。排出量的統計分組相近,並未帶來相同的組織病變結果。[4]
在第 21 日齡的空腸,Occludin 蛋白相對表達均值由感染組 0.380 上升至 P8H 組 0.761;血清 D-乳酸則由 77.82 下降至 56.24 μmol/L。到第 42 日齡,P8H 的 Occludin 為 0.548、感染組為 0.282,但 P8H 仍與未感染組共享統計字母,不能據此稱為完全等效。蛋白與間接滲漏指標支持宿主屏障的改善方向,並未直接證明所有通透性功能均已恢復。[4]
P8 亦未全面逆轉免疫與菌群指標:第 21 日齡的 IL-10 並未隨 P8 回到未感染組水準,若干菌群多樣性指標也未顯著改善。這說明不同宿主反應具有各自的變化幅度,不能用卵囊下降百分比代替整體腸道恢復程度。[4]
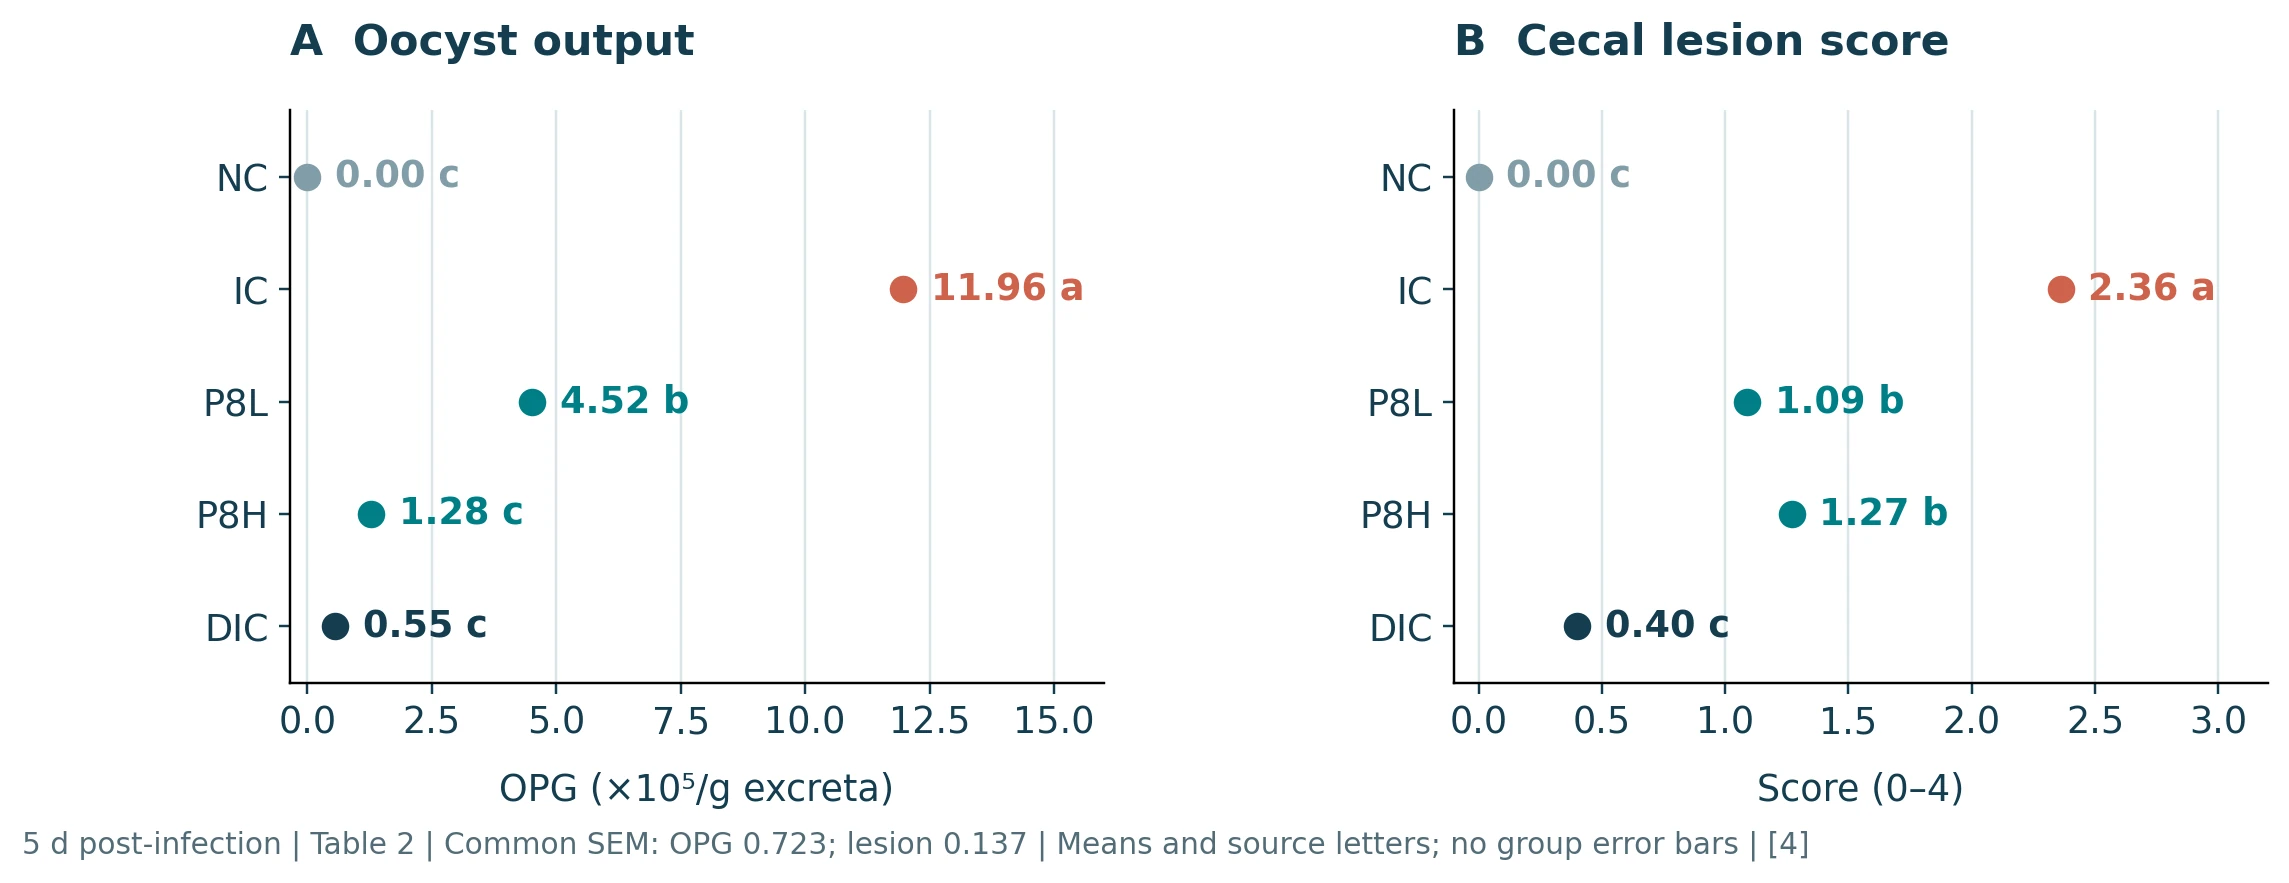
依 Wang 等(2021)Table 2 自繪,感染後第 5 日。NC=未感染;IC=感染;P8L/P8H=原研究兩個 P8 組;DIC=地克珠利組。起始每組 10 欄、每欄 10 隻;糞便按欄收集,盲腸病變 n=6 份/組。原表共同 SEM:OPG 0.723(×10⁵/g)、病變 0.137;此為表列共同統計量,不補為各組獨立誤差線。字母為原表多重比較分組,無共同字母表示 p<0.05;兩個終點整體 p=0.001。CC BY 4.0。[4]
P8H 與 DIC 的 OPG 共享字母 c,但盲腸病變分屬 b 與 c。共享字母只表示未達顯著差異,不證明等效。
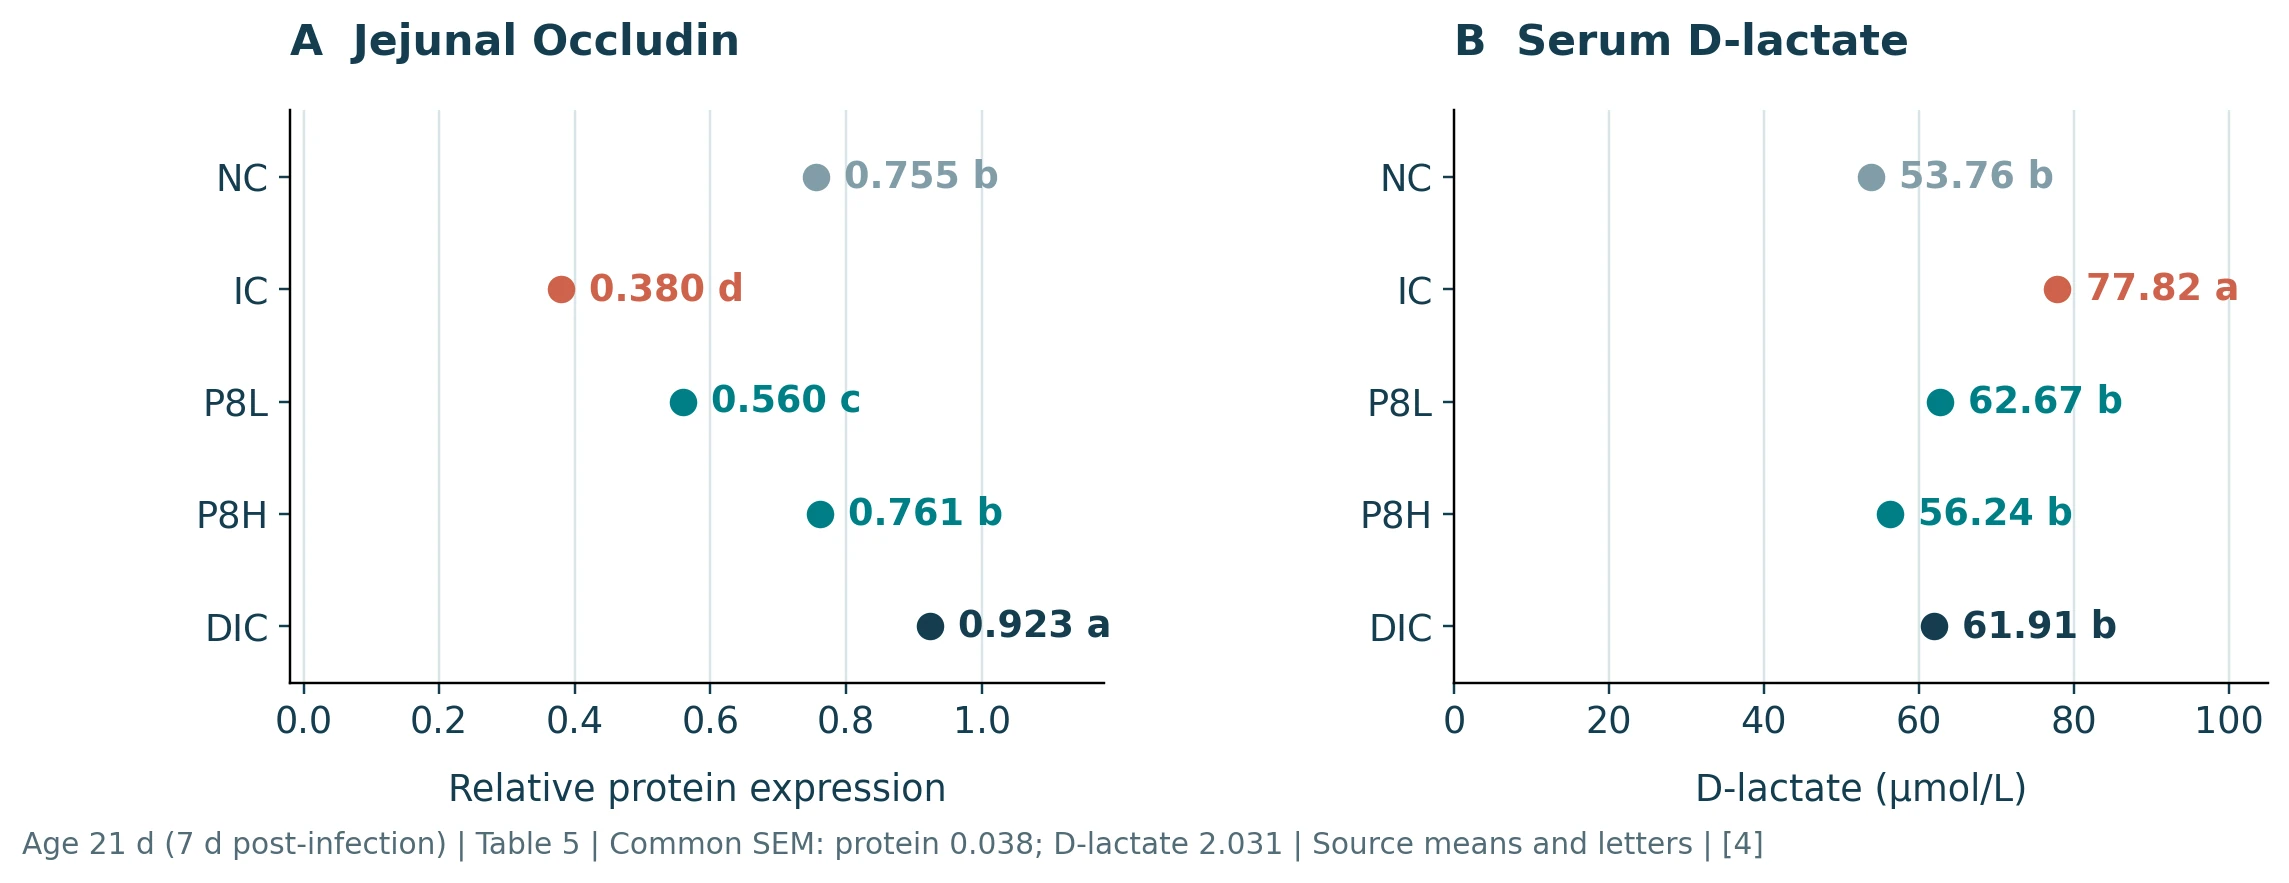
依 Wang 等(2021)Table 5 自繪,第 21 日齡(感染後第 7 日);組別同圖二。血液及腸道採樣按每組 10 欄、每欄 1 隻;Western blot 使用空腸黏膜 n=6/組。蛋白為原文定義的相對表達,血清 D-乳酸為 μmol/L。原表共同 SEM:Occludin 0.038、D-乳酸 2.031;未補各組獨立誤差線。無共同字母表示 p<0.05;整體 p 分別原報 0.000(本篇記作 p<0.001)及 0.001。CC BY 4.0。[4]
P8H 的蛋白表達與 D-乳酸均朝未感染組方向變化;D-乳酸是間接標誌,不能直接當作 FITC-d 通透性。
從蛋白到組織:BS22 補上另一組雞隻證據
2026 年 BS22 研究納入 E. tenella 與 E. acervulina 共感染情境。每組起始 18 隻,於感染後第 5、10 日分別比較十二指腸及盲腸。菌株介入組的組織損傷較輕,ZO-1、CLDN5 的 mRNA 與 ELISA 蛋白量亦較感染組維持得好。多個層次朝一致方向變化,使屏障保護的解釋較具支持。[5]
這項研究的功能範圍仍應由量測界定:組織形態與蛋白含量並不是示蹤物通透性的直接測量。原文對卵囊資料的單位表述亦有不一致,本篇不將其數值與 P8 的 OPG 換算排名。P8 與 BS22 的共同訊息是特定菌株能影響宿主反應,並非所有植物乳桿菌都具有相同效果。[4, 5]
合生元與後生元材料:改善病變不必然修復所有功能
Shah 等人的合生元包含 Limosilactobacillus reuteri、Enterococcus faecium、Bifidobacterium animalis、Pediococcus acidilactici 與果寡糖。在 E. maxima 合併產氣莢膜梭菌的壞死性腸炎模型中,合生元減輕第 21 日齡中腸病變,但當日 FITC-d 通透性未獲改善,合生元主效應 p=0.98。這提供病理與功能不同步的實例;由於是複合感染,也不能全部歸為單獨抗球蟲作用。[6]
Alagbe 等人的酵素處理酵母材料,則在球蟲感染研究中伴隨較低卵囊計數、較高 OCLN 表達及回腸杯狀細胞密度,但未完全抵消感染的不利影響。[7] 另一項活菌、熱失活乳酸菌與培養上清比較,使用球蟲疫苗來源材料、法氏囊病疫苗背景、產氣莢膜梭菌及 DON 的複合模型;熱失活材料呈現部分組織保護,不能直接作為單純球蟲病的療效證據。[8]
後生元共識要求具有健康效益的失活微生物及/或其組分製備物;純化代謝物或無菌上清不能僅因來源於發酵就自動歸入同一類。[9] 在屏障研究中,應沿用實際受測材料的身分,再判斷其支持的是黏液、炎症、組織還是功能層次。
把「控制感染」與「恢復屏障」連成可判讀的研究事實
科學上,較低卵囊排出可與較輕病變並存,但兩者不能互相替代;上皮修復也需要杯狀細胞、連接蛋白和通透性等資料相互支持。現有研究足以說明,球蟲感染的後果由寄生蟲、微生物背景與宿主反應共同形成,部分微生物材料可改善其中若干環節。[1, 2, 3, 4, 5, 6, 7, 8]
閱讀應用證據時,先核對同一腸段、同一時間點與同一對照,再連接排出、形態、蛋白及功能。只有橫斷取樣的研究,也不能宣稱已證明恢復速度變快。這樣的解讀保留菌株與製劑的研究價值,同時讓「腸道恢復」成為有實際量測支持的結論。
表二 微生物研究的材料與情境
| 研究情境 | 主要屏障證據 | 適用解讀 |
|---|---|---|
| P8/混合球蟲 [4] | 空腸蛋白、D-乳酸及病理 | 宿主與寄生蟲終點分列 |
| BS22/雙種球蟲 [5] | ZO-1、CLDN5 mRNA/蛋白及組織 | 支持組織保護;未直接量測通透性 |
| 合生元/壞死性腸炎 [6] | 中腸病變、FITC-d、免疫反應 | 病變改善與功能恢復可能不同步 |
| 酵母或失活材料 [7, 8] | 杯狀細胞、OCLN 或組織保護 | 依實際材料與感染背景解讀 |
延伸閱讀 References
參考文獻 References
[1] Graham Danielle, Petrone-Garcia Victor M, Hernandez-Velasco Xochitl et al. (2023). Assessing the effects of a mixed Eimeria spp. challenge on performance, intestinal integrity, and the gut microbiome of broiler chickens. Frontiers in Veterinary Science 10: 1224647. doi:10.3389/fvets.2023.1224647
[2] Choi Janghan, Kim Wookyun, Acevedo-Villanueva Keila (2022). Interactions of Microbiota and Mucosal Immunity in the Ceca of Broiler Chickens Infected with Eimeria tenella. Vaccines 10(11): 1941. doi:10.3390/vaccines10111941
[3] Tomal Florian, Sadrin Guillaume, Gaboriaud Pauline et al. (2023). The caecal microbiota promotes the acute inflammatory response and the loss of the intestinal barrier integrity during severe Eimeria tenella infection. Frontiers in Cellular and Infection Microbiology 13: 1250080. doi:10.3389/fcimb.2023.1250080
[4] Wang Yang, Lv Xiaoguo, Li Xuemin et al. (2021). Protective Effect of Lactobacillus plantarum P8 on Growth Performance, Intestinal Health, and Microbiota in Eimeria-Infected Broilers. Frontiers in Microbiology 12: 705758. doi:10.3389/fmicb.2021.705758
[5] Zhang Xinhui, Zhou Xuan, Wang Lidan et al. (2026). Protective efficacy of Lactobacillus plantarum BS22 against Eimeria tenella and Eimeria acervulina co-infection in broiler chickens. Poultry Science 105(10): 107342. doi:10.1016/j.psj.2026.107342
[6] Shah Bikas R, Hakeem Walid A, Shanmugasundaram Revathi et al. (2023). Effect of synbiotic supplementation on production performance and severity of necrotic enteritis in broilers during an experimental necrotic enteritis challenge. Poultry Science 102(10): 102959. doi:10.1016/j.psj.2023.102959
[7] Alagbe Emmanuel Oluwabukunmi, Schulze Hagen, Adeola Olayiwola (2023). Growth performance, nutrient digestibility, intestinal morphology, cecal mucosal cytokines and serum antioxidant responses of broiler chickens to dietary enzymatically treated yeast and coccidia challenge. Journal of Animal Science and Biotechnology 14: 57. doi:10.1186/s40104-023-00846-z
[8] de Souza Marielen, Baptista Ana Angelita Sampaio, Menck-Costa Maísa Fabiana et al. (2024). Modulation of Broiler Intestinal Changes Induced by Clostridium perfringens and Deoxynivalenol through Probiotic, Paraprobiotic, and Postbiotic Supplementation. Toxins 16(1): 46. doi:10.3390/toxins16010046
[9] Salminen S, Collado MC, Endo A et al. (2021). The International Scientific Association of Probiotics and Prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics. Nature Reviews Gastroenterology & Hepatology 18: 649–667. doi:10.1038/s41575-021-00440-6
圖源:三張數據圖依原表均值及統計資訊自繪;概念圖為原創示意。檢索截止:2026年10月22日。