
從群落線索建立菌株證據
腸道菌群研究的應用價值,在於將群落中的線索連接到身分明確、可再次取得、且功能經過量測的菌株。某個菌屬在健康動物中較常見,可以形成研究假說;保存分離株與基因組,才能比較它實際做了什麼。豬腸道菌株庫、人體共生菌資源與近期競爭排斥研究,正逐步補上這條證據鏈。不過,資源數量、體外活性與宿主效益回答的是不同問題,必須分別判讀。[1, 2, 3]
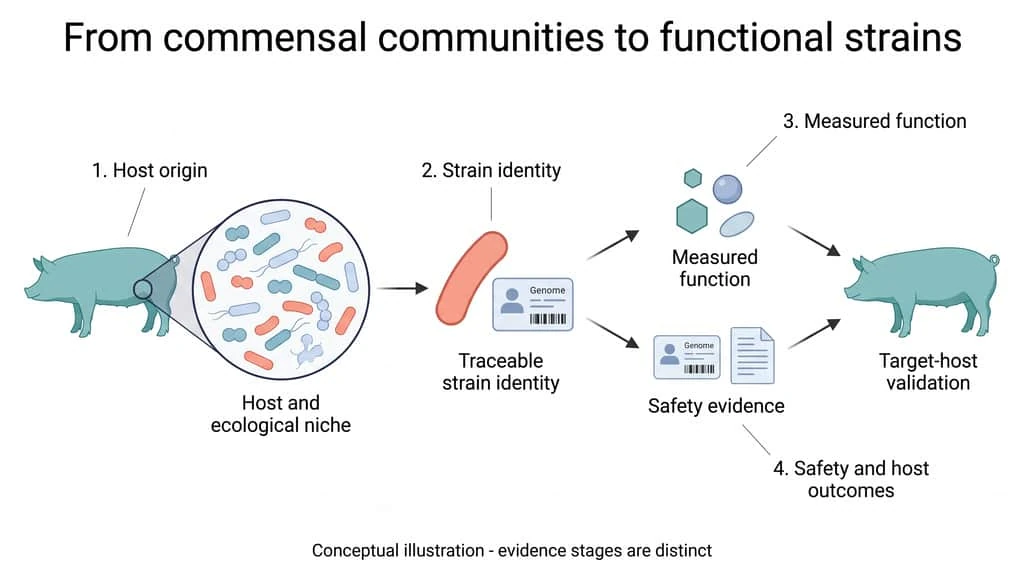
培養體學(culturomics)透過多樣化的培養與鑑定策略,將原本只出現在序列資料中的微生物轉為可研究的實體資源。它與宏基因組互補:定序有助於定位尚未被保存的多樣性,菌株則讓功能比較、材料分析與結果重現成為可能。圖一呈現這些資料的連接關係;箭頭代表證據銜接,不表示每一步已在所有菌株完成。[1, 3, 4]
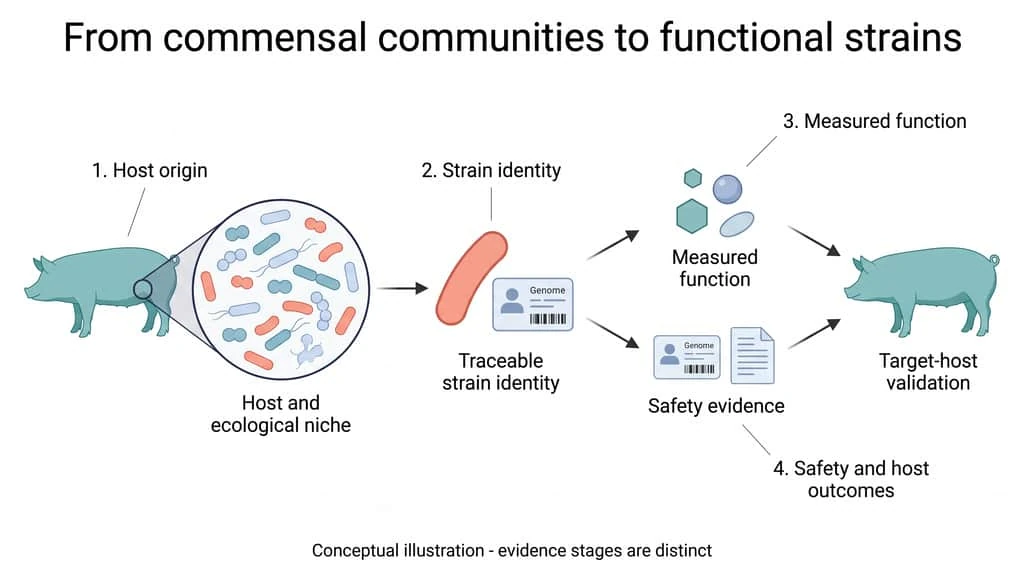
概念示意。宿主來源、菌株身分、實測功能及安全資料共同支援後續目標宿主研究;不是實驗結果或所有菌株均已完成驗證的流程。n與統計不適用。依文獻主題整合,以BioRender製作。[1, 3, 5, 6]
菌株庫的價值來自身分與可取得性
PiBAC研究保存117株、涵蓋110個物種,並將菌株、基因組與來源資料連接。這樣的資源可以讓另一個研究團隊取得同一材料,而不只重複檢測同名菌屬。研究亦指出,該收藏仍不足以代表菌株層級的全部差異;增加物種覆蓋與比較同物種不同株,是兩個不同的工作方向。[1]
人體HiBC在2025年報告340株、198個物種,並提供基因組、質體與來源等資料。其意義是可供跨研究使用的材料與資訊架構,並非這198個物種都具有已證實的保健效果。人體資源可借鏡於動物平台的資料管理,但健康關聯、宿主適應性及安全結論仍須回到實際菌株與目標物種。[3]
因此,菌株資料不宜只有名稱與單次活性分數。每筆功能結果應能回連實際材料、比較對照、實驗單位及統計,並保留後續修訂。若菌名更新或研究團隊使用不同代碼,保存編號與別名對照可維持同一材料的連續性。這種紀錄方式讓新發現可以增補證據,也讓不一致或未達顯著的結果不會因資料整理而消失。[5, 6, 7]
宿主與採樣部位會改變資源的解讀
同一套豬來源菌株序列,在不同宿主資料中的覆蓋並不相同。圖二保留PiBAC對豬、人與鼠腸道擴增子資料的原始覆蓋分布,顯示研究不能只靠菌名相同就假定跨宿主等效。圖內縱軸為OTU覆蓋比例;這是序列比對指標,並非定殖成功率,也不是全部腸道功能的完成比例。[1]
採樣部位同樣重要。2025年豬扁桃腺研究從5份健康豬樣本建立518個分離株、涵蓋23個屬,另以101份樣本分析群落。基因組預測與體外測試指出部分分離株具有拮抗潛力,但這是口咽生態位的研究,不能當成腸道定殖或豬場疾病控制已獲證實。採樣位置、供體數與分離株數應分欄保存,避免把大量菌落當作大量獨立動物。[4]
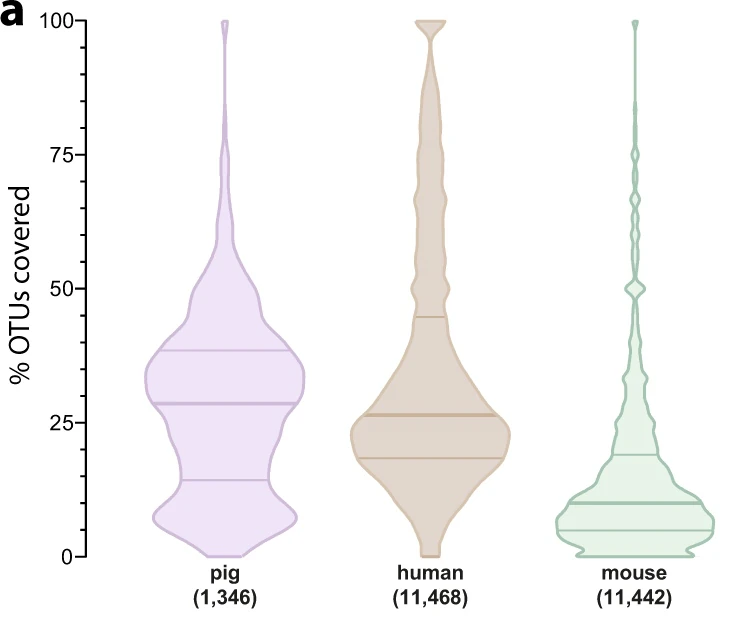
PiBAC原圖4a裁切,保留完整三組分布。豬n=1,346、人n=11,468、鼠n=11,442份腸道16S擴增子資料;縱軸為覆蓋的OTU比例(%)。橫線為中位數與第25、75百分位。保留作者原圖,不新增顯著性標記或兩兩比較。此圖量測序列覆蓋,非定殖或療效。[1]
競爭排斥是功能線索而非通用產品功效
Gómez-Martínez等人的2026年研究比較28個共生菌分離株,材料包含豬及野豬來源分離株與菌種庫參考株。C. butyricum CECT 361與B. thermoacidophilum J1/23 YB69,在體外共同培養終點相對單獨培養對照,報告約2.87與2.63 log₁₀ bacteria/mL的下降。無細胞上清也出現活性,且部分材料在調整酸鹼後仍保留部分作用,提示營養競爭之外尚有其他因素。[2]
這項研究以qPCR估計菌量,結果不能直接換算成活菌殺滅率或豬隻保護率。原文對超過1 log下降的分離株數,在摘要寫20/28、討論寫18/28;兩者不一致,因此不據此推算整體成功率。共培養、無細胞上清與特定活性分子也不是同一種材料,效應應歸於實際受測的製備與條件。[2]
表一 不同資源與研究回答的問題
| 來源與材料 | 直接證據 | 判讀界線 |
|---|---|---|
| PiBAC 豬腸道菌株庫 [1] | 117株、110物種及相連基因組 | 資源與功能多樣性,不代表每株均有宿主效益 |
| HiBC 人體菌株資源 [3] | 340株、198物種與可用資料 | 人體資源,不等於動物適用性 |
| 豬扁桃腺分離株 [4] | 518株、23屬;部分體外拮抗 | 口咽生態位,不等於腸道或田間療效 |
| 共生菌與無細胞上清 [2] | 特定材料的體外菌量變化 | qPCR與活菌數、宿主保護分開 |
| 活菌 LM1 生長豬研究 [7] | 145頭、5組、42天;部分宿主指標改變 | 生長指標未見顯著劑量趨勢 |
宿主指標改變未必帶來生長差異
Limosilactobacillus mucosae LM1提供另一種判讀範例。2022年研究納入145頭生長豬、5組、每組6欄,觀察42天。部分免疫與腸道形態指標改變,但體重、日增重、採食量及增重飼料比並未檢出顯著線性或二次劑量趨勢。圖三依原表呈現日增重的全部組別與共同SEM;不能只挑平均數較高的一組宣稱促進生長。[7]
這也說明篩選指標的生物意義必須明確:代謝物、免疫因子與生產表現可以有不同反應。沒有顯著趨勢,不等於已證明各組完全相同;某項免疫指標改變,也不能自動補上疾病或經濟效益。功能菌株的定位,應寫明它支持的是哪一個終點,以及在哪種宿主與材料條件下觀察到。[7]
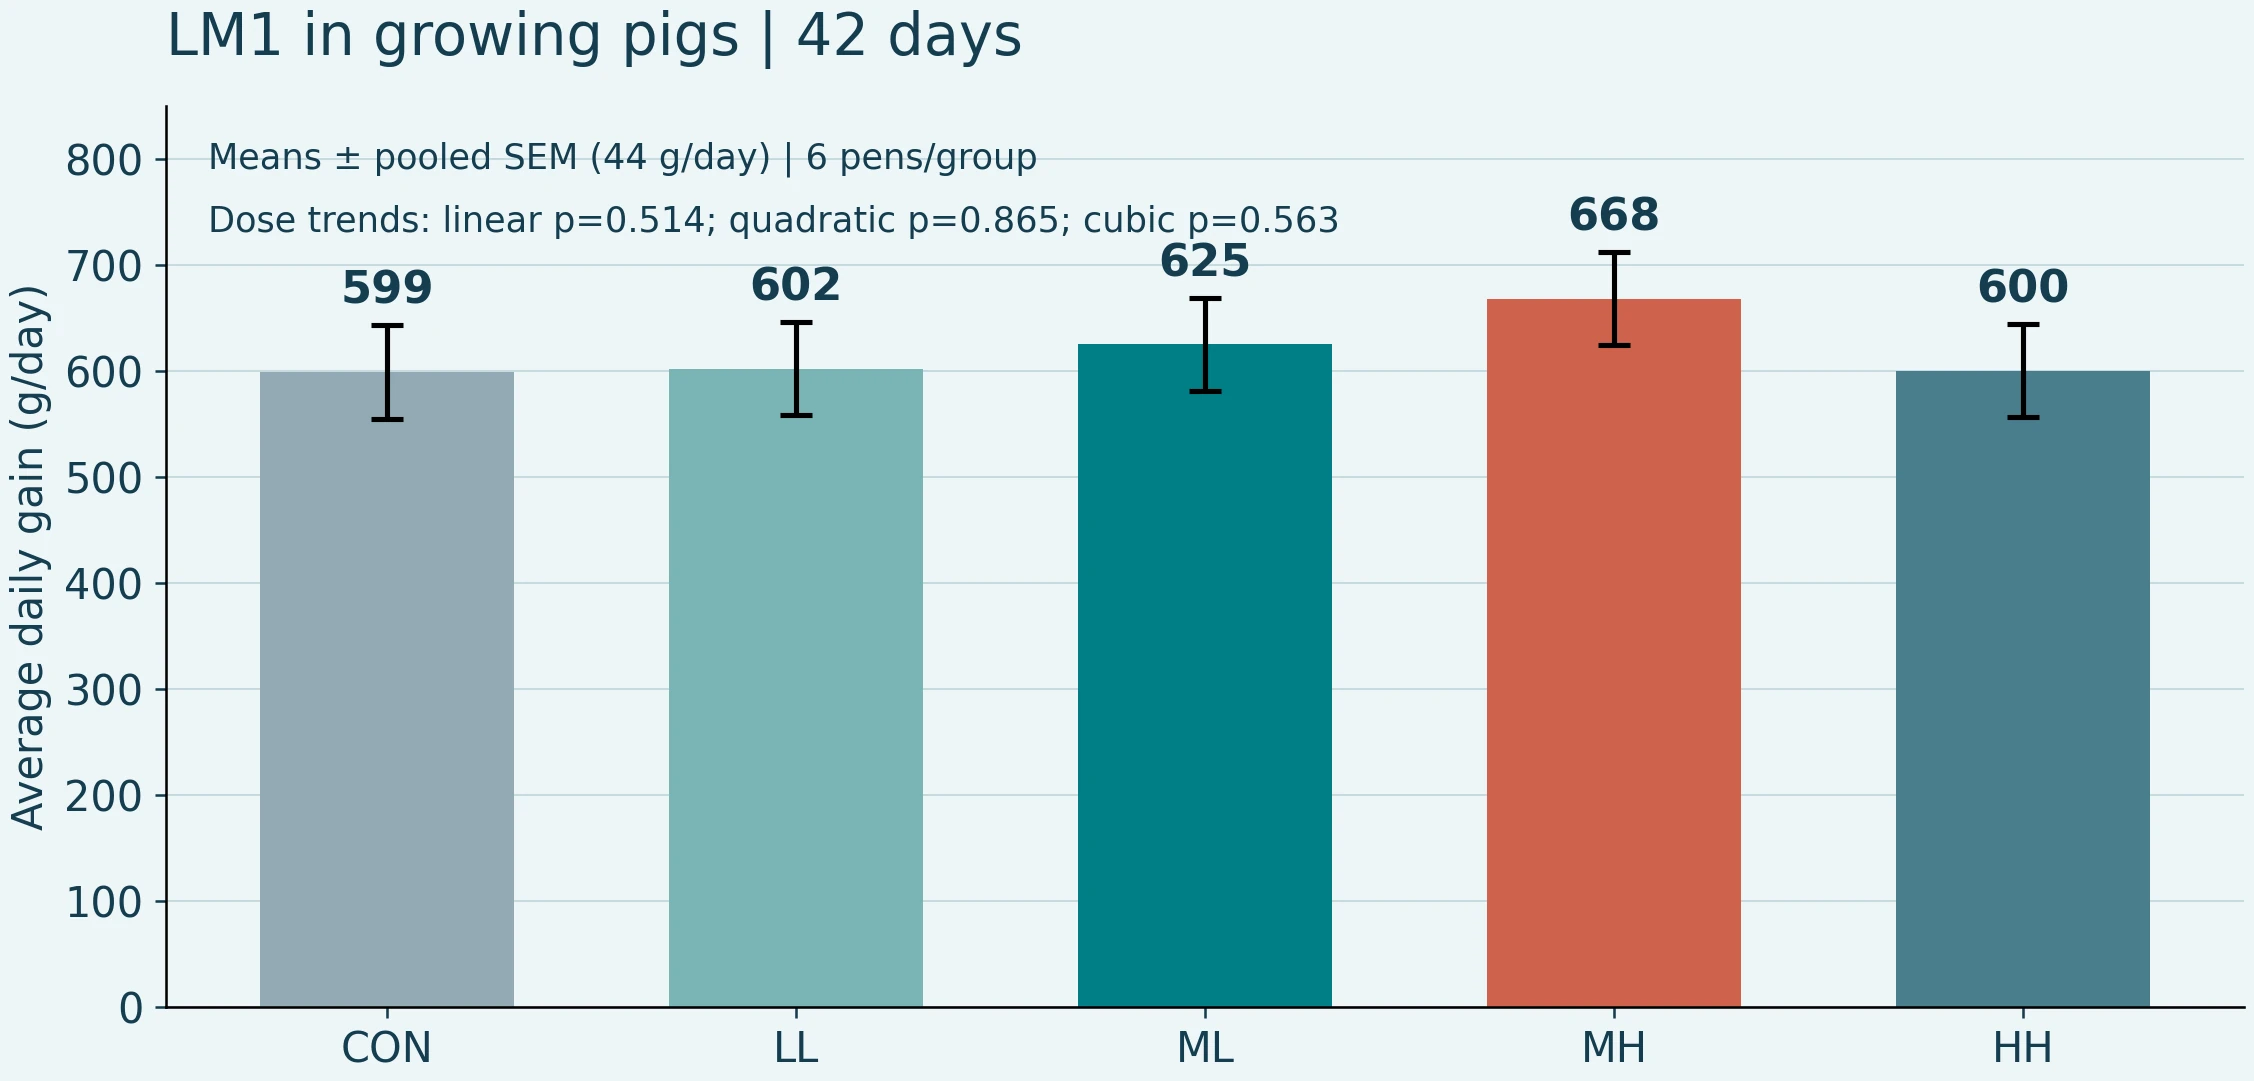
依Zhang等人原表2重繪。145頭生長豬、42天、每組6欄;CON為對照,LL、ML、MH、HH依序為低、中低、中高、高LM1處理組。日增重均值依序599、602、625、668、600 g/day,誤差為共同SEM 44 g/day。線性p=0.514、二次p=0.865、三次p=0.563,均非顯著;沒有新增兩兩比較或顯著星號。[7]
以可追溯資料連接功能與安全
全基因組定序(WGS)可連接分類身分與潛在風險。EFSA的2024年文件建議以基因組比較支持菌株的分類鑑定,並評估相關耐藥性、毒力及有害代謝物基因;這不表示基因組沒有檢出風險就等於所有情境都安全。序列品質、參考資料與分析版本,會影響結果能否被再次核對。[5]
2025年EFSA指引則進一步強調,資料應對應實際受評估菌株,並區分活性微生物、失活生物量與生產菌株。產品用途與最終材料不同,暴露與評估問題也不同。對微生物平台而言,保存同一菌株的來源、別名、保存編號、基因組、功能材料及結果版本,才能讓採購、研發與後續應用使用同一套可追溯身分。[6]
整合這些研究,資源平台的核心成果是能把菌株身分、功能證據與宿主情境連在一起。物種數量說明資源廣度,體外結果提出功能方向,宿主研究則回答特定終點。三者各自保留原始條件,才有助於形成可重現、可比較並可持續更新的微生物技術資料。[1, 3, 6, 7]
表二 可追溯功能菌株需要連接的資料
| 資料層 | 應保留的內容 | 用途 |
|---|---|---|
| 來源與身分 [1, 3, 6] | 宿主、部位、菌株代碼、別名、保存編號 | 讓材料與資料一一對應 |
| 基因組與分類 [5] | 序列與分析版本、品質及參考分類 | 支持身分確認與重查 |
| 功能與材料 [2, 7] | 活菌或上清、對照、實驗單位、終點及統計 | 將效應歸於實際受測材料 |
| 安全與用途 [5, 6] | 相關風險資料、最終材料及目標宿主 | 依使用情境評估,不以單項活性代替 |
圖源註記
圖1: BioRender generated concept; publication/export rights follow the connected account terms; no third-party experimental figure used. Source
圖2: Wylensek et al. 2020, CC BY 4.0; cropped Fig. 4a; original colours and data unchanged. Source
圖3: Zhang et al. 2022, CC BY; redrawn from factual Table 2 values; no individual observations reconstructed. Source
參考文獻 References
- Wylensek D, Hitch TCA, Riedel T, et al. (2020). A collection of bacterial isolates from the pig intestine reveals functional and taxonomic diversity. Nature Communications 11: 6389. 10.1038/s41467-020-19929-w
- Gómez-Martínez S, Pérez-Pérez L, Ucero-Carrretón A, et al. (2026). Exploring the potential for competitive exclusion of commensal probiotic candidates against the insidious swine pathogen Brachyspira hyodysenteriae. Animal Microbiome 8: 19. 10.1186/s42523-025-00511-y
- Hitch TCA, et al. (2025). HiBC: a publicly available collection of bacterial strains isolated from the human gut. Nature Communications 16: 4203. 10.1038/s41467-025-59229-9
- de Oliveira IMF, Fredriksen S, Gutiérrez MF, et al. (2025). Culturomics of the pig tonsil microbiome identifies new species and an untapped source of novel antimicrobials. Microbiome 13: 86. 10.1186/s40168-025-02064-3
- European Food Safety Authority (2024). EFSA statement on the requirements for whole genome sequence analysis of microorganisms intentionally used in the food chain. EFSA Journal 22(8): e8912. 10.2903/j.efsa.2024.8912
- EFSA Scientific Committee (2025). Guidance on the characterisation of microorganisms in support of the risk assessment of products used in the food chain. EFSA Journal 23: e9705. 10.2903/j.efsa.2025.9705
- Zhang Q, Vasquez R, Yoo JM, Kim SH, Kang DK, Kim IH. (2022). Dietary Supplementation of Limosilactobacillus mucosae LM1 Enhances Immune Functions and Modulates Gut Microbiota Without Affecting the Growth Performance of Growing Pigs. Frontiers in Veterinary Science 9: 918114. 10.3389/fvets.2022.918114
本文為研究教育用途,不代表任何商業製劑的特定功效。